
Sáng chế UCF chuỗi đầy đủ cytokine
các nghiên cứu của purecell
PURECELL GROUP: PURECELL / purecell.au / Purrecell Australia / www.purecellaus.com

Sáng Chế Công Nghệ UCF Chuỗi Cytokine “Đảo Ngược Tuổi Đã Thành Hiện Thực”
Thảo luận về UCF chuỗi – đầy – đủ cytokine
Khái quát về UCF (cytokine trong huyết tương máu cuống rốn trẻ sơ sinh)
-
- Tính năng vượt trội của UCF, sản phẩm đã được cấp bằng sáng chế chứa cytokine trong huyết tương máu cuống rốn trẻ sơ sinh.
Cytokine là các tế bào phân tử nhỏ bé được tiết ra từ các tế bào khác nhau trong cơ thể con người. Tế bào cơ thể người di chuyển trong đại dương cytokine. Tế bào gốc sử dụng những phân tử tín hiệu tự nhiên của chính nó (cytokine) để tái tạo và sửa chữa. Điều này đã được khoa học biết đến rộng rãi. Có tới hàng trăm cytokine, chemokine, exosome (phức chất bao gồm hơn 5 exonucleases) và hormones. Tổ hợp này sẽ thay đổi theo độ tuổi cả về chủng loại và số lượng.
Chuyên gia khoa học nổi tiếng quốc tế về tế bào gốc, top 5 thế giới về nhân bản phôi người, nhà khoa học sáng lập ra PURECELL và nhà sáng chế công nghệ UCF – Giáo sư Andrew French, đã nghiên cứu và tìm ra chuỗi cytokine chiết xuất từ huyết tương trong máu cuống rốn trẻ sơ sinh có chức năng chính là thúc đẩy sự phát triển và sửa chữa những sinh vật sống. Giáo sư Andrew French đã tìm ra tuổi máu càng trẻ các chuỗi cytokine càng khỏe mạnh, trong khi cytokine trong máu sinh vật trưởng thành lại có xu hướng viêm nhiễm và lão hóa. Vì vậy, các sáng chế UCF sử dụng nguyên liệu thô là huyết tương của máu cuống rốn trẻ sơ sinh khỏe mạnh.
Cuống rốn chứa tới hơn 700 cytokines và chemokines được phân ra làm 6 chủng loại, phụ trách nuôi lớn tế bào, thúc đẩy tăng trưởng nhanh và biệt hóa / trưởng thành. Mặc dù có rất nhiều protein này cả về số lượng và chủng loại, mỗi protein đều có khả năng phát triển một loạt các hiệu quả sinh học khác nhau, từ hoạt động riêng rẽ đến hoạt động chéo trùng lặp.
Phải mất rất nhiều thời gian để các nhà khoa học phân loại tổ hợp 700 cytokines trong máu con người để tìm ra tổ hợp có cơ chế đảo ngược tuổi tác. Các nhà khoa học lại cần thêm một thời gian dài hơn nữa để xác định chuỗi thời gian hoạt động của chúng. Số lượng tổ hợp của hơn 700 cytokine là con số kinh ngạc. Tương tự như bộ gien di truyền của người, không có bất cứ một cá thể cytokine riêng rẽ nào có thể hoạt động như một chuỗi – đầy – đủ cytokine. Ưu điểm đặc biệt của UCF là UCF không phải là một cytokine đơn thuần, UCF là tổng hợp của hơn 700 chuỗi – đầy – đủ cytokine thuộc 6 chủng loại.
Yếu tố cuống rốn (UCF) cytokine là chuỗi – đầy – đủ cytokine được tách ra từ huyết tương máu cuống rốn trẻ sơ sinh, không đồng nhất, đã được vô trùng và làm đông khô. UCF bao gồm (chuỗi-đầy-đủ) cytokine, chemokine và những exosome quan trọng (được tế bào tiết ra, truyền tín hiệu giữa các tế bào, là các túi dạng đĩa với các tác dụng sinh học của phản ứng miễn dịch), vv…có trạng thái phân bổ và tính chất ổn định theo từng đợt khác nhau. Đồng thời những tổ hợp chuỗi – đầy – đủ cytokine UCF có khả năng tái tạo, kháng viêm mạnh mẽ và độc nhất, hoàn toàn khác biệt so với nhóm trưởng thành (18 – 65 tuổi).
-
- Nghiên cứu khả thi về ứng dụng và mức độ an toàn của sáng chế UCF – cytokine trong huyết tương máu cuống rốn trẻ sơ sinh
Nhìn chung các sản phẩm UCF đã được chứng minh có hiệu quả trị liệu trên diện rộng ở nhiều lĩnh vực trị liệu bằng truyền cục bộ hoặc toàn thân. Hiện tại, UCF đã được chứng minh là dược phẩm an toàn, là phương pháp trao đổi huyết tương để trị liệu đã được khoa học chấp nhận.
Hôm nay, sản phẩm UCF được nghiên cứu và chuẩn bị bởi các chuyên gia hàng đầu của PURECELL, là chuỗi đầy đủ của yếu tố cytokine trong huyết tương của tế bào máu cuống rốn trẻ sơ sinh đã được chọn lọc, phân tách, làm sạch và tối ưu hóa trong phòng thí nghiệm theo những tiêu chuẩn đặc biệt. Đây là sản phẩm tái tạo tế bào độc đáo nhất trên thế giới. Bằng hàng hoạt nghiên cứu và thí nghiệm khắt khe, các sản phẩm y học ở mức độ tái tạo đã được chứng minh là những sản phẩm chống lão hóa hoàn toàn an toàn với hiệu quả điều trị đặc biệt mạnh mẽ, được cấp phép sản xuất bởi TGA Úc, và chính phủ Úc cấp phép kinh doanh xuất khẩu.
Cytokine máu cuống rốn UCF được tách ra từ huyết tương trong máu cuống rốn trẻ sơ sinh. Máu cuống rốn được chọn lọc từ ngân hàng máu AABB của Mỹ và được thu thập từ người hiến tặng. Tất cả những người cho đều đã ký giấy cam kết hiến tặng, được theo dõi tình trạng bệnh truyền nhiễm và bệnh di truyền tới 9 tháng như: HIV, viêm gan B và C, virus ung thư bạch cầu T-cell, giang mai và virus cytomegalo. Toàn bộ mẫu máu cuống rốn được kiểm tra xét nghiệm vi khuẩn, nấm mốc để đảm bảo các sản phẩm được tiệt trùng và an toàn trước khi đưa vào ngân hàng máu AABB của Mỹ
Sau khi được kiểm tra và kiểm duyệt bởi FDA Mỹ, các mẫu máu cuống rốn tại ngân hàng AABB – Mỹ lại một lần nữa phải được TGA của Úc xét nghiệm thông qua khi đến Úc. Sau đó, các mẫu máu cuống rốn này lại tiếp tục được chuẩn NATA xét nghiệm kiểm tra lại các bệnh truyền nhiễm nếu có. Chỉ sau khi vượt qua toàn bộ các cuộc kiểm tra này, chuỗi đầy đủ cytokine mới được tách ra trong phòng thí nghiệm chuẩn cGMP quốc tế. Các mẫu được thu thập riêng theo từng nhóm máu A, B, O, AB.
Đặc biệt hơn nữa, sáng chế công nghệ độc nhất của PURECELL cho sản phẩm UCF luôn hoàn toàn tuân thủ các kiểm duyệt của Cục Quản lý Sản phẩm Điều trị (TGA) của Úc về khả năng ổn định hoạt tính sinh học kéo dài đến 2 năm trong nhiệt độ phòng, là sự đột phá ra khỏi hạn chế về kỹ thuật của các công nghệ tái tạo tế bào của y học hiện đại. Vì thế, UCF đáp ứng được nhu cầu thương mại và vận chuyển ở quy mô lớn, có thể dễ dàng sử dụng cho tiêm truyền cục bộ và toàn thân.
Tất cả các mẫu phẩm đều được xử lý trước khi đem đi đông khô và tiệt trùng sàng lọc. Sáng chế quy trình độc nhất của đội ngũ các nhà khoa học của Purecell có khả năng tận dụng tối đa mức độ hoạt động của chuỗi đầy đủ cytokine.
-
- Chứng minh tác dụng của các sản phẩm UCF cytokine
PURECELL Group đã hoàn thành thực hành và chứng minh hiệu quả của các sản phẩm UCF:
3.1. Quy trình sản xuất UCF được tiệt trùng hoàn toàn, không nhiễm virus (viêm gan, HIV và các loại virut ác tính khác), vi khuẩn (bao gồm cả các xoắn khuẩn, vv…) và nấm. Nguyên liệu này được thu thập từ máu cuống rốn với giai đoạn lấy huyết tương thực hiện hoàn toàn theo qui chuẩn an toàn máu cao nhất AABB của Mỹ. Đồng thời, các xét nghiệm được thực hiện bởi các phòng thí nghiệm đạt chuẩn của các cơ quan quản lý dược phẩm lớn nhất thế giới: FDA – Mỹ và TGA – Úc.
3.2. Thu thập phân tách theo từng nhóm máu (A, B, AB, O).
3.3. Tiếp tục được xét nghiệm trong phòng thí nghiệm chuẩn quốc tế NATA tại Đại học Monash – Úc, khẳng định tính đồng nhất và mức độ tiêu chuẩn của các sản phẩm cytokine trong mọi đợt sản xuất.
3.4. So nghiệm chéo huyết tương được thực hiện với quy trình quản lý chặt chẽ và phức tạp, kiểm tra qua đường trên da, tiêm trên da, nội sinh, nội khớp, nội buồng trứng, tiêm dưới da, tiêm bắp và tiêm tĩnh mạch để đảm bảo an toàn tuyệt đối trong điều trị trên cơ thể người.
3.5. Các sản phẩm UCF đã được chứng minh hiệu quả từ lý thuyết đến thực hành, có tác dụng chữa trị nhiều loại bệnh như viêm xương khớp, viêm khớp dạng thấp, các bệnh về gân, tái tạo da, tái tạo các mạch máu viêm loét do tiểu đường, mọc tóc, tăng huyết áp, rối loạn tiểu tiện, rối loạn cương dương, bệnh thoái hóa thần kinh, hội chứng yếu và đột quỵ. Trong đó, đặc biệt rõ rệt là hiệu quả điều trị khớp gối.
-
- Phân tích so sánh giữa tế bào gốc và cytokine
Như chúng ta đã biết, trong các lĩnh vực khoa học và y tế, chúng ta có thể (và đã đự đoán được) việc sử dụng và kích thích khả năng tự hàn gắn tế bào của cơ thể để sửa chữa, phản ứng lại các loại tổn thương tới thách thức từ bên trong và bên ngoài cơ thể. Năng lực tự sửa chữa mạnh mẽ nhất của cơ thể chúng ta chính là tế bào gốc, có khả năng tái tạo các mô, nội tạng và toàn bộ cơ thể. Y học gọi đó là “các tế bào vạn năng”- “universal cells”.
Tuổi tác có liên quan chặt chẽ đến sự giảm sút chức năng của tế bào gốc, và đi kèm với đó là sự suy giảm tiềm năng tái tạo mô và các cơ quan nội tạng. Tế bào gốc là hệ thống sửa chữa của cơ thể. Một khi được kích thích, chúng sẽ bắt đầu thay đổi môi trường mô để bắt đầu sửa chữa. Nếu chúng ta có thể tìm ra cách để khôi phục tiềm năng của tế bào gốc khỏi quá trình lão hóa, chúng ta có thể làm chậm lại, thậm chí là đảo ngược sự già đi của con người.
Vai trò của các tế bào gốc trong sửa chữa, hàn gắn tổn thương tế bào, là tái tạo lại các tuyến truyền tín hiệu phức tạp (ví dụ như: cytokine, chemokine, vv…). Những tuyến tín hiệu này được sản xuất ra bởi tế bào là cơ chế phản ứng lại khi gặp những phân tử tín hiệu tiết ra bởi các mô bị tổn thương.
Tương tự như vậy, chúng ta cũng đã xác định được khả năng tồn tại của những tế bào gốc nuôi cấy trong ống nghiệm sau khi tiêm vào cơ thể chỉ kéo dài khoảng 48 giờ, bao gồm cả thông qua tiêm cục bộ và tiêm tĩnh mạch.
Chuỗi cytokine đặc biệt trong huyết tương máu cuống rốn trẻ sơ sinh cung cấp khả năng kích thích và sức mạnh sửa chữa hàng loạt những tế bào soma và mô. Cơ chế trị liệu UCF là dựa trên nguyên lý này.
Khi xem xét rằng các sử dụng tế bào gốc để chữa trị rất phức tạp, tiêu tốn thời gian và có tính khả biến rất lớn, thì với nguồn cytokine tín hiệu càng trẻ, hiệu quả sửa chữa tế bào và mô sẽ càng cao. Ứng dụng của UCF trong nuôi cấy tế bào đã được khẳng định trong phòng thí nghiệm. Mức độ phát triển và hình thành Đơn vị hình thành khuẩn lạc (CFU) trong môi trường UCF lớn hơn rất nhiều so với nuôi cấy trong môi trường nhân tạo hay FBS.
-
- Ba điểm vượt bậc chính của sáng chế công nghệ UCF cytokine
Thứ nhất: Sự vượt bậc về khoa học tế bào, bắt đầu đi vào lĩnh vực cytokine
Trong lĩnh vực y học tái tạo tế bào toàn cầu hiện nay, hầu hết các dự án nghiên cứu khoa học đều tập trung phát hiện, thử nghiệm và áp dụng các loại tế bào gốc khác nhau trong sửa chữa tế bào và điều trị bệnh. Nhà khoa học chủ chốt của Purecell và nhà phát minh sáng chế UCF – Giáo sư Andrew French đã lần đầu tiên phát hiện ra không phải bản thân tế bào gốc (kể cả là tế bào gốc tự thân hay dị thân hay tế bào gốc từ cuống rốn trẻ sơ sinh) tự tiến hành sửa chữa tế bào mà là nhờ các phân tử tín hiệu sinh học do chúng sinh ra – CYTOKINE. Có hơn 700 loại cytokine này thuộc 6 chủng khác nhau. Khi chúng già đi, chúng làm việc trong các chuỗi khác nhau để tạo ra những hiệu quả trị liệu khác nhau. Nguyên lý sửa chữa là sử dụng cytokine để chọn lọc truyền các tín hiệu sửa chữa đến những tế bào gốc đang ngủ quên trong cơ thể để đánh thức những tế bào gốc này thực hiện cơ chế tự sửa chữa, và nhắm những tín hiệu sinh học tự nhiên này tới những tế bào gốc trong cơ thể đang ngủ quên. Tế bào gốc lặp lại sự tự sửa chữa, chuỗi phản ứng domio này xác định hiệu quả của cytokine, liên tục, liên tiếp không có phản ứng từ chối hay phản ứng phụ nào, chính xác hơn, hiệu quả hơn, an toàn hơn và mạnh mẽ hơn. Sáng chế được cấp bằng cho công nghệ UCF của PURECELL trích xuất hiệu quả hơn 700 chuỗi đầy đủ cytokine thuộc 6 chủng loại, và đột phá sâu hơn mức độ tế bào gốc, tiến vào lĩnh vực nhỏ hơn nhưng mạnh mẽ hơn là cytokine.
Thứ 2: Sự vượt bậc qua hạn chế về tuổi và đi vào kỷ nguyên của công nghệ sửa chữa bằng tế bào không-tuổi
Giáo sư Andrew French cũng phát hiện ra rằng cho dù tế bào gốc tự thân của người trưởng thành có khỏe mạnh đến đâu cũng không phải là trẻ, và khả năng sửa chữa của cytokine không còn hiệu quả và mạnh mẽ nữa do hạn chế về tuổi tác. Vì vậy, sáng chế UCF cytokine của PURECELL được chiết xuất từ huyết tương trong máu cuống rốn của người trẻ nhất: “không tuổi” – trẻ sơ sinh.
Chuỗi cytokine đầy đủ trong huyết tương máu cuống rốn trẻ sơ sinh được chiết xuất chọn lựa và tinh chế để đảm bảo chuỗi tổ hợp tối ưu nhất, với năng lực sửa chữa mạnh mẽ nhất có hiệu quả điều trị bệnh bền bỉ lâu dài và triệt để. Đây là lý do để sáng chế công nghệ UCF cytokine vượt qua tế bào gốc để trở thành tiên phong trong kỷ nguyên trị liệu tế bào, với công nghệ dẫn đầu thế giới.
Thứ 3: Đột phá về thời gian duy trì hoạt tính của sản phẩm tế bào, duy trì thời gian hoạt tính dài, sánh ngang với các sản phẩm thuốc tiêu chuẩn
Tế bào gốc có thời gian hoạt tính sinh học cực kỳ ngắn chỉ khoảng 6 tới 48 tiếng ở nhiệt độ phòng, vốn là nút cổ chai của các ứng dụng và các phương pháp trị liệu y học tái tạo. Sáng chế của Giáo sư Andrew French cho phép chế biến thành công cytokine chuỗi đầy đủ thành các sản phẩm dạng rắn có thể đong đếm chính xác, và các sản phẩm UCF đã được kiểm tra tính ổn định sinh học, khả năng duy trì hoạt tính sinh học đến tận 2 năm ở nhiệt độ thường. Đây là lần đầu tiên trong ngành y học tái tạo 1 sản phẩm ở cấp độ tế bào có thể triệt tiêu những vấn đề của các sản phẩm tự thân và lão hóa, trở thành sản phẩm dị thân, tiêu chuẩn hóa và quy mô lớn. Hiện tại Purecell UCF cytokine là công nghệ khởi đầu cho kỷ nguyên ứng dụng thương mại của dược phẩm tái tạo tế bào.
UCF Trị Viêm Xương Khớp
UCF Trong Điều Trị Viêm Xương Khớp (OA)
Khớp Gối Là Điểm Tựa Của Cuộc Sống
Cùng với thời gian, hao mòn sẽ dần dần xuất hiện ở dây chằng đầu gối, sụn chêm, sụn xương bánh chè và các mô liên quan khác. Theo nhiều năm nghiên cứu lâm sàng, khớp gối của con người có tuổi thọ làm việc khoảng 60 năm.
Mỗi người có những đặc điểm thể chất và thói quen sinh hoạt khác nhau. Do đó khớp gối sẽ tổn thương và viêm ở những mức độ khác nhau vào những thời điểm khác nhau trong suốt cuộc đời. Khi tổn thương khớp gối xảy ra và các triệu chứng: viêm, đau, phù, tê và cứng khớp xuất hiện. Tuyệt đối không nên bỏ qua. Quá trình lão hóa có thể gây ra các bệnh thoái hóa xương và khớp, cùng với khả năng tự sửa chữa kém dần theo tuổi làm giảm chất lượng cuộc sống với những cơn đau và vận động hạn chế. Ngay cả những người trẻ tuổi và năng động hơn cũng không tránh khỏi tổn thương đầu gối khi chơi thể thao. Lối sống vận động nhiều gây ra chấn thương căng thẳng. Viêm bao hoạt dịch thúc đẩy sự phát triển sớm của bệnh thoái hóa khớp vốn luôn luôn diễn ra – bao gồm cả bệnh viêm xương khớp. Ở bất kể tuổi nào, chấn thương đầu gối làm bạn yếu đi và có thể ảnh hưởng đến hàng loạt các hoạt động thường ngày.
Những vấn đề này có thể ảnh hưởng nghiêm trọng đến chất lượng cuộc sống của bạn.
Hiện tại, “tiêu chuẩn vàng” trong điều trị bệnh thoái hóa khớp là giai đoạn đầu bệnh nhân được yêu cầu nghỉ ngơi, giảm cân và dùng thuốc giảm đau. Sau khi bệnh tiến triển nặng thêm theo thời gian, hầu hết các bệnh nhân sẽ cần phẫu thuật.
Phẫu thuật này có thể có một số hình thức, từ nội soi để “làm sạch” cơ bản đến phẫu thuật toàn bộ khớp gối (thay thế). Tất cả các can thiệp bằng phẫu thuật đều là xâm lấn và có thể mang theo các biến chứng hậu phẫu khác nhau cho bệnh nhân. Ví dụ như: khớp giả bị lỏng, nhiễm trùng, thuyên tắc – huyết khối tĩnh mạch (VTE). Điều tra cho thấy, tỷ lệ mắc huyết khối tĩnh mạch sâu sau phẫu thuật thay toàn bộ khớp và phẫu thuật gãy xương là 43,2%. Ngoài ra, những bệnh nhân đã bị thoái hóa khớp gối sẽ phải hạn chế vận động và lối sống, thời gian phục hồi kéo dài và đau đớn.
Nguồn gốc của UCF
Sáng chế công nghệ độc quyền UCF của Purecell được phát triển tại phòng thí nghiệm Victorian của chính phủ, thuộc Phức hợp Y tế tịnh tiến Monash, Melborne. Được phân tách từ huyết tương máu cuống rốn trẻ sơ sinh khỏe mạnh là sự kết hợp đặc biệt của các protein hòa tan có trọng lượng phân tử thấp, được sản xuất bởi các phân tử tín hiệu tự nhiên của em bé, sẽ kích hoạt và đánh thức các tế bào gốc đang ngủ quên để sửa chữa các tế bào bị hư hỏng và lão hóa, cho phép hàn gắn các mô được tác động.
UCF có thể tạo điều kiện đẩy nhanh quá trình sửa chữa tổn thương khớp gối và chấn thương ở cấp độ tế bào. Công nghệ an toàn, hiệu quả và thuận tiện để điều trị bệnh thoái hóa khớp, cho phép bệnh nhân tăng cường tự do vận động không đau đớn, cuộc sống ngày càng cải thiện tích cực và năng động hơn nhiều. Quan trọng nhất, nếu bệnh nhân áp dụng điều trị liệu trình tiếp tục, UCF có thể trì hoãn thậm chí loại bỏ can thiệp phẫu thuật cho bệnh nhân.
Trị liệu viêm xương khớp bằng UCF-OA
Bệnh nhân sẽ được yêu cầu xét nghiệm MRI các khớp liên quan và chẩn đoán bởi các bác sĩ của Purecell. Các bác sĩ đã được Purecell tiêm Purecell nội UCF – tiêm tĩnh mạch viêm xương khớp có thể làm giảm nhu cầu phẫu thuật, ít xâm lấn, với thời gian phục hồi ngắn, cho phép ít ảnh hưởng đến các hoạt động sống bình thường. Tiêm UCF vào trong khớp viêm của Purecell được thực hiện bởi các bác sĩ chuyên ngành Cơ Xương Khớp có thể làm giảm yêu cầu phẫu thuật, là thủ thuật ít xâm lấm, thời gian hồi phục ngắn, ít ảnh hưởng tới hoạt động sống.
Tiêm UCF vào trong khớp viêm của Purecell là phương pháp an toàn nhất, hiệu quả và tiện lợi nhất để sửa chữa khớp gối hiện đang áp dụng trên toàn thế giới.
Thông thường, hầu hết các bệnh nhân chỉ cần điều trị một lần. Những bệnh nhân có khớp gối tổn thương lâu năm hoặc tổn thương nghiêm trọng có thể cần điều trị nhiều lần. Các bác sĩ của Purecell sẽ đánh giá và chẩn đoán dựa trên thói quen sống của từng bệnh nhân, cũng như mức độ tổn thương của khớp viêm để đưa ra tư vấn phù hợp.
Chỉ định điều trị UCF OA:
– Thoái hóa.
– Viêm màng hoạt dịch.
– Viêm bao hoạt dịch.
– Rách sun chem.
– Chấn thương dây chằng.
– Tổn thương sụn.
Ai có thể tiếp nhận điều trị viêm xương khớp UCF – OA ?
-
- Các vận động viên và những người đam mê hoạt động chơi những bộ môn thể thao có tác động lớn đến đầu gối: chạy, cử tạ, leo núi, vv….
-
- Những người đứng lâu hoặc đi giày cao gót trong thời gian dài.
-
- Những bệnh nhân lớn tuổi có bệnh thoái khớp.
-
- Bệnh nhân bị chấn thương đầu gối cấp tính.
Trường hợp 1: Chấn thương thể thao
Nguyên nhân: Thói quen vận động mạnh, dẫn đến mất sụn nghiêm trọng ở đầu gối phải.
Bệnh sử:
– Năm 1994: Phẫu thuật khớp gối phải lần thứ nhất. Quay lại tập luyện bóng đá dưới 1 tháng sau phẫu thuật. Không tuân thủ lời dặn của bác sĩ thực hiện hồi phục thể chất đều đặn, dẫn tới vấn đề ở đầu gối bị tái phát.
– Năm 2001, 2005 và 2014: Tái phẫu thuật khớp gối. Năm 2014, bác sĩ khuyến nghị phẫu thuật lắp gối giả khi bệnh nhân mới 39 tuổi. Gối giả có thể khiến sự nghiệp cảnh sát của anh phải dừng lại và anh sẽ không thể tập thể thao được nữa. Vì vậy, anh đã quyết định tiếp tục tìm hiểu các phương pháp điều trị khác.
Kế hoạch điều trị: Năm 2017, anh quay về Úc, biết tới PURECELL và công nghệ trị liệu UCF đầu tiên trên thế giới, nên đã quyết định điều trị sửa chữa khớp gối tại PURECELL.
Hiệu quả điều trị: Chỉ sau một tháng các cơn đau đã giảm đi rõ rệt
Sau 3 tháng, các cơn đau hoàn toàn biến mất, bệnh nhân trở lại cuộc sống bình thường. Anh quyết định điều trị UCF cho khớp còn lại và ghi nhận hiệu quả tương tự.
Trường hợp 2: các bệnh thoái hóa của tuổi già
Nguyên nhân: hậu quả từ thời kỳ cải cách văn hóa phải đi bộ xa và nhiều, khớp gối tổn thương nghiêm trọng, mắc bệnh khớp nhiều năm.
Bệnh sử:
– Bà Fang trải qua cuộc phẫu thuật nhỏ cho gối phải vào năm 2002, nhưng cuộc phẫu thuật không thành công. Vì vậy bà phải phụ thuộc và các biện pháp trị liệu truyền thống: thuốc, vật lý trị liệu và các phương pháp trị liệu bảo tồn khác.
– Những năm gần đây, các cơn đau ở gối phải ngày tăng, đi lại khó khăn, phải di chuyển bằng xe lăn điện và nạng, hàng đêm phải dùng thuốc ngủ và thuốc giảm đau loại nặng để giảm đau.
– Năm 2017, dựa trên kết quả chụp MRI, các chuyên gia xác định khớp gối cần thay thế. Ở tuổi 81, bà Fan sẽ phải đối mặt với rủi ro phẫu thuật cao và thời gian hồi phục kéo dài.
Kế hoạch điều trị: 21/10/2017,Bác sĩ Ian Chinsee, Trưởng khoa điều trị của PURECELL đã thực hiện điều trị trúng đích, tiêm UCF vào khớp gối phải bị đau do thoái hóa cho bà Fang.
Hiệu quả điều trị:
– Sau 1 tháng điều trị, những cơn đau giảm đi rõ rệt, bà không còn phải sử dụng xe lăn và đã đi lại được bình thường.
– Sau 3 tháng, bệnh nhân có thể đi lại bình thường không đau đớn, cuộc sống của bà đã trở lại bình thường.

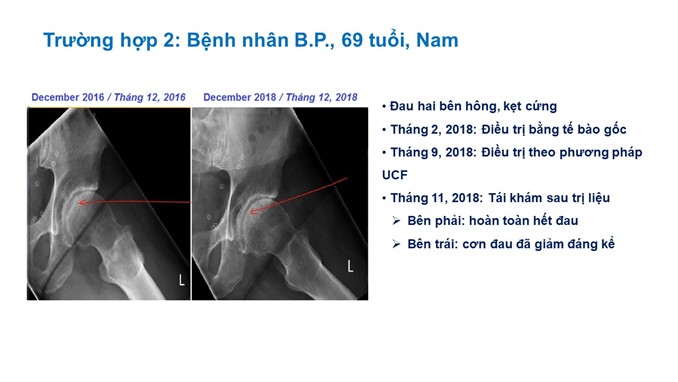

Phân tích những ưu điểm của kỹ thuật tái tạo khớp gối bằng công nghệ UCF của Purecell và phương pháp điều trị khớp gối truyền thống
Cách tiếp cận toàn cầu hiện nay để điều trị các vấn đề về khớp gối chủ yếu là điều trị bảo tồn và phẫu thuật.
Điều trị bảo tồn chủ yếu dựa vào ưu điểm của y học cổ truyền Trung Quốc kết hợp với vật lý trị liệu, châm cứu, đắp thuốc. Việc điều trị này được sử dụng khá rộng rãi để làm giảm các triệu chứng lâm sàng của bệnh nhân. Quá trình trị liệu đơn giản và chi phí tương đối thấp, nhưng nó không ngăn chặn bệnh lý tiến triển, không thể sửa chữa hay tái tạo khớp gối, tỷ lệ tái phát cao.
Điều trị phẫu thuật thay khớp gối nhân tạo là một trong những phương pháp giúp bệnh nhân có thể vận động và đi lại dễ dàng hơn. Đây cũng là giải pháp cuối cùng cho những bệnh nhân đã áp dụng các phương pháp khác nhưng vẫn không đạt được hiệu quả như mong muốn. Nhất là những bệnh nhân có phần sụn khớp bị tổn thương quá nặng như khớp gối biến dạng, cứng khớp, khó cử động khớp gối. Mặc dù phương pháp phẫu thuật về cơ bản có thể giải quyết được tình trạng đau và viêm cục bộ của khớp, nhưng bản chất nó là một phương pháp điều trị xâm lấn gây đau đớn và tốn kém cho bệnh nhân. Phẫu thuật những ca thay thế sụn khớp gối đòi hỏi kỹ thuật cao, vì vậy bệnh nhân phải thực hiện ở một cơ sở y tế tốt, với đội ngũ y bác sỹ tay nghề và kinh nghiệm điều trị giỏi. Phương pháp phẫu thuật thay khớp gối nhân tạo cũng có thể mang đến những rủi ro khá cao. Người bệnh có thể bị nhiễm trùng, hoại tử da, sai khớp, lỏng khớp gối nhân tạo,… Điều này sẽ gây ảnh hưởng nghiêm trọng đến khả năng vận động bình thường của người bệnh
Chính vì những ưu nhược điểm của hai phương pháp điều trị truyền thống nói trên, việc tìm tòi nghiên cứu một phương pháp điều trị đơn giản, dễ thực hiện, chi phí hợp lý, vết thương nhỏ, ít xâm lấn, có thể điều trị trúng đích vào vùng sụn khớp bị tổn thương, giải quyết triệt để tiến trình phát triển của bệnh, đã trở thành một hướng nghiên cứu chính của nghiên cứu lâm sàng.
Phương pháp tái tạo sụn khớp gối bằng UCF của Purecell đối với các tổn thương khớp gối đã giải quyết được tất cả các nhược điểm nói trên cả về vấn đề chi phí điều trị hay hiệu quả điều trị triệt để lâu dài. Đây là phương pháp dùng UCF kích thích việc sửa chữa, tái tạo và thay thế phần tổn thương mà KHÔNG CẦN PHẪU THUẬT. Sụn khớp mới được cơ thể tự tái tạo nên KHÔNG ĐÀO THẢI. Quá trình điều trị ít xâm lấn, chỉ tiêm trúng đích và truyền tĩnh mịch nên KHÔNG VIÊM NHIỄM và KHÔNG RỦI RO. Sự phát triển của y học hiện đại, sự tiến bộ của công nghệ sinh học tế bào đã mang đến cho loài người những kỳ tích trong y học, sự tái sinh của sự sống.



UCF Trong Phục Hồi Chức Năng Buồng Trứng
Hiệu quả của UCF trong phục hồi chức năng Buồng trứng và các bệnh lý liên quan
I. Tại sao chúng ta phải chăm sóc sức khỏe buồng trứng
Buồng trứng là một trong những cơ quan trọng nhất trong cơ thể người phụ nữ, đóng vai trò cốt yếu trong sinh sản và hình thức bên ngoài. Buồng trứng liên quan tới hoạt động của hơn 400 mô và cơ quan nội tạng như: bộ phận sinh sản, da, các dây thần kinh và miễn dịch..vv…Khi tuổi tác ngày càng cao, chức năng buồng
trứng dần suy yếu và teo lại. Nếu buồng trứng không được chăm sóc cẩn thận, dễ xảy ra suy giảm sớm buồng trứng, dẫn tới: da nhăn, vết sạm, mất độ đàn hồi, thậm chí là các bệnh phụ khoa, mãn kinh sớm, mất kinh..vv…Để làm chậm quá trình lão hóa và mãn kinh, việc chăm sóc và bảo vệ buồng trứng cần được thực
hiện càng sớm càng tốt.
II. Cơ chế và hiệu quả của UCF trong phục hồi buồng trứng
1. Sản phẩm đã được cấp bằng sáng chế UCF cytokine. Sau khi được truyền vào cơ thể sẽ di chuyển theo máu đi khắp toàn bộ cơ thể, mang theo đó là tác động kích hoạt tế bào gốc buồng trứng tự phục hồi, điều hòa hệ thống sinh sản của nữ giới, nâng cao chức năng buồng trứng, thúc đẩy sự phát triển của nang trứng, đồng thời điều hòa sự tiết hormones nữ (estrogen, progesterone, adrogen). Sản phẩm cũng có thể làm giảm bệnh lậu, tăng tiết dịch âm đạo và điều chỉnh các vấn đề chức năng của hệ thống sinh sản nữ (đau bụng kinh, kinh nguyệt không đều và hội chứng tiền kinh nguyệt). Là một sản phẩm chống lão hóa, sử dụng UCF sẽ xóa dần các dấu hiệu tuổi già, mang lại vẻ ngoài trẻ trung.
2. Nuôi dưỡng các tế bào buồng trứng, điều hòa lượng hormone trong cơ thể, đánh thức sự sống mới cho tế bào buồng trứng và kéo dài một cách hiệu quả khả năng sinh sản.
3. Phục hồi trúng đích những tế bào buồng trứng tổn trương, về cơ bản ngăn ngừa u nang, suy buồng trứng sớm và ung thư buồng trứng.
4. Giúp nang đầy đặn, tăng cường sinh lực, cải thiện toàn diện chức năng buồng trứng và cải thiện suy buồng trứng sớm.
5. Nuôi dưỡng buồng trứng, cải thiện chứng viêm phụ khoa, kinh nguyệt không đều, u xơ tử cung, lãnh đạm tình dục và cải thiện chất lượng đời sống tình dục.
6. Sử dụng cùng với sản phẩm được cấp bằng sáng chế toàn cầu – SKQ1 – Tinh chất chống các gốc tự do sẽ giúp ngăn ngừa quá trình oxy hóa, chống lão hóa buồng trứng, cải thiện độ bóng của da, tăng cường khả năng miễn dịch và trì hoãn tiền mãn kinh.
7. Duy trì diện mạo trẻ trung, giữ dáng, trì hoãn lão hóa, điều hòa cân bằng hệ thống nội tiết, ổn định môi trường bên trong cơ thể, cải thiện chức năng miễn dịch của cơ thể, kéo dài thời kỳ kinh nguyệt, trì hoãn mãn kinh, thực sự phục hồi sức sống cho phụ nữ để đạt được vẻ đẹp hài hòa cả bên trong và bên ngoài.
III. Các ca khôi phục chức năng buồng trứng bằng UCF
1. Trường hợp 1
Tiền sử: Cô W đã lập gia đình nhiều năm và rất mong muốn có con. Sau khi hoàn thành kiểm tra khoang tử cung và ống dẫn trứng trong bệnh viện vào ngày 6 tháng 4 năm 2016 với kết quả ghi nhân không có gì bất thường, cô quyết định tiến hành thụ tinh nhân tạo. Sau khi thực hiện thụ tinh nhân tạo nhiều lần trong hai năm
liên tiếp, cô vẫn thất bại.
Khi được chẩn đoán bởi các chuyên gia y tế từ PURECELL tại Úc, cô được
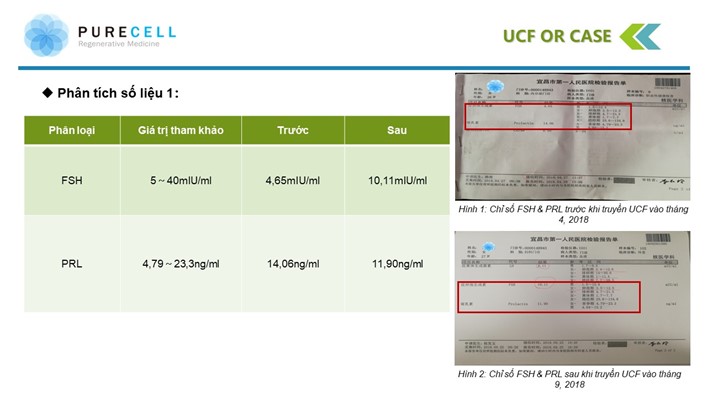
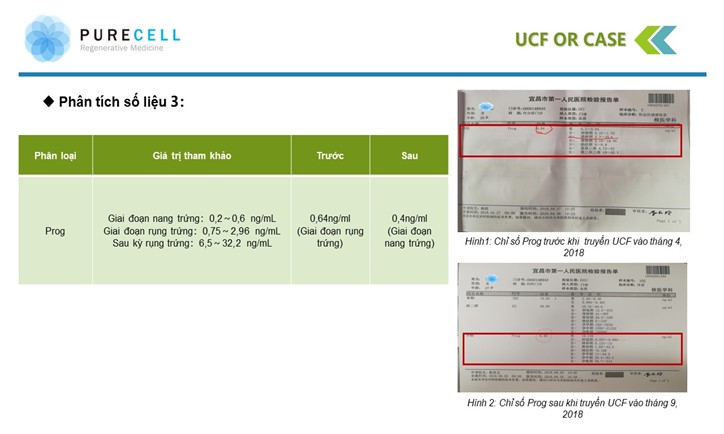
thông báo rằng do chỉ số progesterone của cô thấp hơn nhiều so với chỉ số bình thường (0,05 ng/ml so với chỉ số thông thường là từ 0,2 đến 0,6 ng/ml) dẫn đến việc cô không thể thụ thai tự nhiên và không thành công trong thụ tinh nhân tạo (xem hình dưới để biết chi tiết).
Phác đồ điều trị: Dựa trên kết quả xét nghiệm, điều kiện và nhu cầu thể chất
của cô, các chuyên gia y tế PURECELL – Úc đã phát triển một kế hoạch trị liệu phục hồi cho cô. Cô đã nhận được UCF cytokine phục hồi buồng trứng cao cấp nhất vào ngày 6 tháng 5 năm 2018.
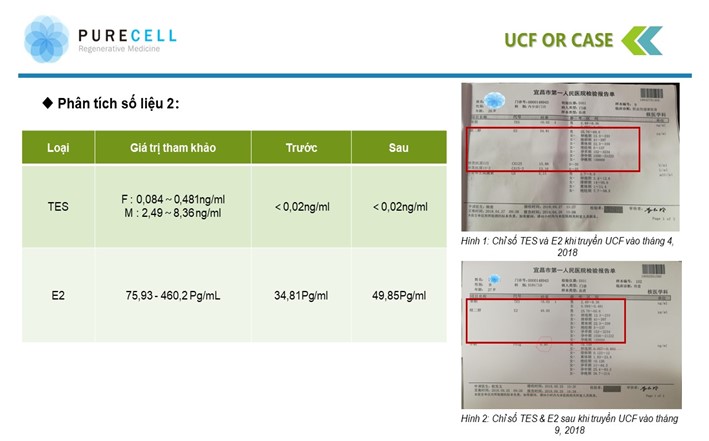
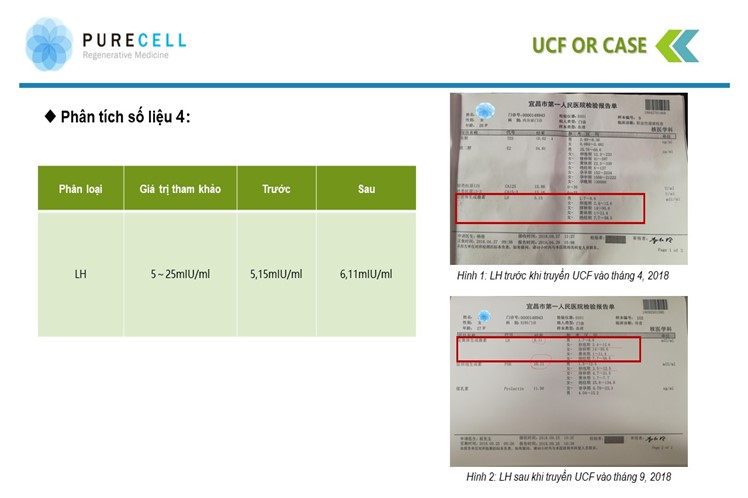
Hiệu quả: 4 tháng sau khi nhận UCF, ngày 25 tháng 9 năm 2018 cô thực hiện xét nghiệm tại bệnh viện đại học địa phương và ghi nhận chỉ số bài tiết
progesterone đã trở lại mức bình thường (cụ thể là 0,4 ng/ml), các chỉ số nội tiết tố như hormone kích thích nang trứng và hormone luteinizing cũng được cải thiện đáng kể (xem hình dưới để biết chi tiết)
Theo dõi tiếp: Vào tháng 12 năm 2018, cô thông báo với chúng tôi rằng cô đã thụ thai thành công một cách tự nhiên và sức khỏe 2 mẹ con đều rất tốt (được khẳng định bởi kết quả kiểm tra trong bệnh viện). Ngày 16 tháng 8 năm 2019, cô đã sinh em bé khỏe mạnh.
Cô kể rằng trong suốt thời kỳ mang thai, tình trạng tinh thần, thể chất và trao đổi chất của cô và mức độ hấp thu và phát triển của em bé đều rất tốt. Sau khi sinh con, thể lực của cô hồi phục tương đối nhanh và em bé rất khỏe mạnh. Cô nói: “Phụ nữ mang thai nhận UCF cảm thấy thực sự khác biệt trong khi mang thai và sau khi sinh con”
2. Trường hợp 2
Trước khi phục hồi hệ thống bằng UCF
Kết quả kiểm tra thể chất của cô T vào ngày 18 tháng 6 năm 2019 ghi nhận chỉ số PRL nằm ở mức tương đối cao (25,1 ng/mL). Chức năng chính của PRL là thúc đẩy sự phát triển và tăng trưởng của ngực, kích thích và duy trì sự tiết sữa, và kích thích sản xuất thụ thể LH của nang, vv…Quá nhiều PRL có thể ức chế sự tiết FSH và LH, ức chế chức năng buồng trứng và ức chế rụng trứng. Hyperprolactinemia là một bệnh rối loạn chức năng trục hạ đồi – tuyến yên – tuyến sinh dục, với các triệu chứng chính như: giảm rõ rệt lượng máu kinh nguyệt, thiểu niệu, vô kinh, vô sinh, galactia và mãn kinh.
Hiệu quả phục hồi
Tháng 6 năm 2019, sáu tháng sau khi trị liệu phục hồi hệ thống bằng UCF không kèm theo bất cứ loại thuốc nào, Ms. T thực hiện 6 xét nghiệm kiểm tra hormone sinh dục (đặc biệt là PRL) và ghi nhận chỉ số PRL trở về mức bình thường (18.13 ng/mL).

UCF Trị Thấp Khớp
UCF Điều Trị Viêm Khớp Dạng Thấp (RA)
Viêm khớp dạng thấp là một trong những loại bệnh viêm khớp phổ biến nhất trên thế giới. Bệnh được biết đến rất sớm trong cộng đồng dân Mỹ bản địa từ vài nghìn năm trước. Nhưng có thể chỉ xuất hiện ở Châu Âu vào thế kỷ 17. Viêm khớp dạng thấp (RA) là bệnh tự miễn mạn tính đặc trưng bởi sự tích tụ của các tế bào viêm vào màng hoạt dịch (niêm mạc khớp) và sự phá hủy các khớp.
Biểu hiện lâm sàng
Viêm đa khớp đối xứng là biểu hiện lâm sàng ban đầu của bệnh. Bệnh thường bắt đầu xuất hiện ở những khớp nhỏ trên tay và chân, rồi lan dần ra các khớp lớn hơn. Viêm niêm mạc khớp sẽ lan ra và gây ra xói mòn bắt đầu ở sụn, rồi chuyển sang xương. Dẫn tới sự phá hủy các khớp, biến dạng và sau cùng là khuyết tật. Nếu sự xói mòn xảy ra ở bệnh thấp khớp (đối với phần lớn các ca bệnh), quá trình này sẽ diễn ra trong 1-> 2 năm đầu tiên, và có thể sớm hơn nữa. Ở ngoài khớp, các biểu hiện khác có thể là các nốt sần, viêm màng ngoài tim, xơ phổi, bệnh lý thần kinh ngoại biên và bệnh thoái hóa tinh bột (amyloidosis).
Điều trị
Không có thuốc điều trị khỏi hẳn bệnh Viêm khớp dạng thấp. Thuốc điều trị thường nằm trong 5 chủng loại dưới đây:
-
- Thuốc kháng viêm không steroid – trong đó rẻ nhất là aspirin – giảm đau và co cứng.
-
- Loại thứ 2 là methotrexate (chống ưng thư và ức chế miễn dịch) và sulphasalazine (giảm đau, chống viêm) – làm chậm tiến triển bệnh, giảm phản ứng giai đoạn cấp tính, có các tác dụng phụ cao, cần theo dõi cẩn thận.
-
- Steroids – có hiệu quả đối với các triệu chứng, không cần giám sát theo dõi, nhưng có hệ quả về lâu dài.
-
- Các loại thuốc ức chế miễn dịch – cần sử dụng 1 lượng nhỏ cho bệnh nhân với bệnh hệ thống.
-
- Các nhân tố sinh học mới – trực tiếp chống lại các cytokine gây viêm, nơi các loại điều trị viêm khớp dạng thấp hiện chưa có.
Ngoài trị liệu bằng thuốc, phẫu thuật chỉnh hình có thể giúp giảm thiểu hậu quả 20 đến 30 năm của bệnh trên những bệnh nhận bị khuyết tật nặng. Vật lý trị liệu và thích nghi có thể giúp thuyên giảm tình trạng khuyết tật. Theo ước tính, áp dụng tối ưu phương pháp quản lý bệnh hiện, áp lực khuyết tật do thấp khớp sẽ giảm hơn 25% nữa ở các nước phát triển. Một số bằng chứng gần đây cho thấy methotrexate có thể giảm tỷ lệ tử vong ở người bệnh.
Tại các quốc gia thu nhập thấp thường xuyên thiếu thốn cơ sở vật chất, bác sĩ chỉnh hình đã điều chỉnh liều theo dõi điều trị bằng methotrexate. Hơn nữa, liệu pháp steroid thường xuyên được sử dụng tự do, bừa bãi. Do vậy, ước tính áp lực khuyết tật do viêm khớp dạng thấp gây ra có thể giảm 40% nếu tăng đầu tư y tế.
Do những người mắc bệnh thấp khớp không thể tham gia bất cứ loại lao động nào mà không đau đớn. Chi phí công dành cho dưỡng bệnh về lâu dài rất lớn. Trong khi đó trị liệu y tế hiện có (không steroid, corticoid và ức chế miễn dịch) không chắc chắn về hiệu quả và mức độ an toàn về lâu dài.
Liệu pháp tế bào và Cytokine
-
- Liệu pháp tế bào
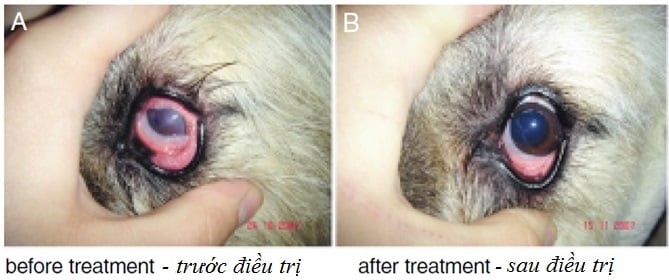
Một số thử nghiệm sử dụng tế bào gốc trung mô (MSC) có nguồn gốc từ máu cuống rốn trẻ sơ sinh đã được thử nghiệm trong vivo và vitro ghi nhận hiệu quả lâu dài. Tế bào gốc trung mô cuống rốn trẻ sơ sinh đã được đề xuất như là liệu pháp thay thế đầy hứa hẹn để điều trị RA vì đặc tính điều hòa miễn dịch của chúng.
MSCs là các tế bào đa năng tồn tại trong nhiều mô của thai nhi, có thể sao chép thành những tế bào không biệt hóa, có khả năng biệt hóa thành các dòng mô trung mô. Tế bào gốc trung mô cuống rốn trẻ sơ sinh cũng có thể điều hòa một số chứng năng miễn dịch thông qua tương tác với các tế bào từ cả 2 hệ thống: miễn dịch bẩm sinh và thích nghi.
Hơn thế nữa, trong khi theo dõi trị liệu vivo, chúng tôi quan sát thấy tế bào gốc trung mô cuống rốn trẻ sơ sinh có thể di chuyển tới các mô bị thương và kiềm chế sự giải phóng các cytokine gây viêm, tạo điều kiện để các tế bào đã hỏng có thể sống sót và thúc đẩy sự dung nạp miễn dịch ngoại biên.
Các nghiên cứu lâm sàng đã xác nhận rằng tế bào gốc trung mô cuống rốn trẻ sơ sinh có lợi ích lâm sàng trong điều trị chống thải ghép cấp tính và các bệnh tự miễn khác như bệnh lupus ban đỏ hệ thống.
Các nghiên cứu trước đây đã phát hiện tế bào gốc trung mô cuống rốn trẻ sơ sinh có thể điều trị viêm khớp dạng thấp và nhiều cơ chế đã được khám phá.
-
- Cytokine
Cytokine là điều những chất điều hòa quan trọng của viêm bao hoạt dịch. Một số loại cytokine, như nhân tố hoại tử khối u (TNF)-α và interleukin (IL)-1, hoạt động bằng cách thúc đẩy phản ứng viêm và gây thoái hóa sụn. Những cytokine khác như IL-4, IL-10 and IL-13 lại vận hành chủ yếu như các phân tử kháng viêm. Mặc dù các cytokine kháng viêm có hiện hữu ở các khớp bị viêm, mức độ của chúng ở bệnh viêm khớp dạng thấp đang tiến triển là quá thấp để vô hiệu hóa các tác động xấu của các cytokine gây viêm.
Báo cáo ghi nhận các cytokine gây viêm và chemokine đóng vai trò thiết yếu trong bệnh viêm khớp dạng thấp. Các tác nhân sinh học nhắm tới các cytokine này đã được thử nghiệm lâm sàng. Ví dụ như: yếu tố hoại tử khối u tái tổ hợp (TNF) và protein đối kháng thụ thể interleukin (IL) -1 của con người.
Tuy nhiên, đã có những tác dụng phụ tương đối nghiêm trọng được quan sát, gồm tái phát và tăng mức nhạy cảm với nhiễm trùng. Rất khó có khả năng là một cytokine duy nhất là nguyên nhân của bệnh viêm khớp dạng thấp. Chúng tôi cho rằng có nhiều khả năng sự kết hợp của các cytokine kháng viêm có thể mang lại phản ứng điều trị tích cực ở người bệnh trong thời gian dài.
UCF
Với các tác dụng lâm sàng tích cực ở bệnh nhân mắc bệnh viêm khớp dạng thấp sử dụng tế bào gốc trung mô cuống rốn trẻ sơ sinh và sự thật về khả năng điều trị thông qua các chuỗi cytokine mà các tế bào này tạo ra, chúng tôi rất muốn theo đuổi thử nghiệm áp dụng những yếu tố chiết xuất từ cuống rốn (Umbilical Cord Derived factors) được tổng hợp trong sản phẩm vô trùng UCF cytokine của Purecell trên toàn thân (truyền tĩnh mạch).
Sản phẩm này đã được sử dụng để điều trị hoàn toàn an toàn (cả điều trị tại chỗ và điều trị toàn thân) trên nhiều bệnh nhân, bao gồm một số ít bệnh nhân mắc bệnh viêm khớp dạng thấp, ghi nhận các tác dụng tốt, lâu dài, không có tác dụng phụ.
Sáng Chế SkQ1 (Tinh Chất Chống Thoái Lão Hóa Tế Bào Toàn Thân)
1. Sự Phá Hủy Của Các Gốc Tự Do (ROS)
Sự phá hủy của các gốc tự do trong cơ thể gây ra tổn thương cho tế bào chúng nhắm tới, không chỉ đẩy nhanh quá trình lão hóa, mà còn gây ra một loạt căn bệnh cho cơ thể con người. Các nhà khoa học chỉ ra rằng hàng tỷ gốc tự do tấn công mọi tế bào trong cơ thể khoảng 3000 lần mỗi ngày. Điều này có thể dẫn tới quá trình oxy hóa màng sinh học tế bào và ty thể, dẫn đến sự phá hủy cấu trúc và chức năng. Do vậy, đẩy nhanh sự xuất hiện của lão hóa và bệnh tật cho con người. Bản thân các gốc tự do là khách quan. Đối với con người, dù là in vivo hay in vitro, các gốc tự do vẫn đang được sản xuất với tốc độ chưa từng thấy. Nhiều nghiên cứu y học và thử nghiệm lâm sàng đã khẳng định rằng có quá nhiều gốc tự do trong cơ thể gây phát triển khối u, tỷ lệ bệnh tim mạch và mạch máu não, tiểu đường, xơ cứng động mạch, chứng mất trí nhớ ở tuổi già và các bệnh khác, vv…đã tăng nhanh rõ rệt. Tốc độ lão hóa tăng nhanh chóng mặt.
Các chủng Oxy Phản ứng hay còn gọi là “các gốc tự do” được tạo ra bởi hàng loạt nguyên nhân bên trong và ngoài cơ thể. Mỗi tế bào trong cơ thể sử dụng rất nhiều năng lượng để hoạt động mỗi ngày. Năng lượng này được tạo ra bởi các “nhà máy năng lượng” siêu nhỏ bên trong từng tế bào riêng lẻ, được gọi là ty thể. Trong quá trình trao đổi chất bình thường của con người, oxy ty thể kết hợp với các chất liên quan trong cơ thể có thể được chuyển đổi thành năng lượng cần thiết để vận hành tế bào (ATP), cũng như các phụ phẩm là các gốc tự do, khi các gốc tự do tích lũy đến một mức độ nhất định có thể gây ra thiệt hại không thể khắc phục cho ty thể và tế bào. Vì vậy, làm suy yếu chức năng của ty thể, gây ra lão hóa tế bào và chết tế bào.
Các gốc tự do có ở khắp mọi nơi trong cơ thể. Chúng tự do, hoạt tính mạnh và rất hung hăng. Điều này là do các gốc tự do là các chất thiếu điện tử với một nhóm electron chưa ghép cặp nên luôn tìm cơ hội để lấy electron từ các chất khác để tự ổn định. Vì thế, những gốc tự do này sẽ tấn công màng tế bào, ty thể và DNA của
các cơ quan nội tạng.
2. Các nghiên cứu về sự tích lũy SkQ1 vào trong ty thể
Đầu tiên khả năng tích lũy của SkQ1 tại ty thể được kiểm nghiệm. Một loại điện cực đặc biệt có khả năng đo nồng độ SkQ1 trong môi trường đã được phát triển cho phép hiển thị khả năng tích lũy SkQ1 trong ty thể và sự phụ thuộc của mức độ tích lũy SkQ1 vào trạng thái chức năng của ty thể. Sự giảm điện thế của ty thể với FCCP đã kích thích sự giải phóng SkQ1 khỏi ty thể. Tuy nhiên, phần lớn SkQ1 vẫn
bám dính vào màng ty thể do tính kỵ nước cao của hợp chất này (hình 1).

Lợi thế chính của các chất chống oxy hóa tổng hợp SkQ1 là khả năng bị giảm bởi chuỗi hô hấp của ty thể. Tính năng đặc biệt này của các hợp chất SkQ1 cho phép chúng hoạt động nhiều lần như các chất chống oxy hóa. Trái ngược với chất chống oxy hóa truyền thống thường mất hoạt tính sau khi tương tác với gốc tự do.
3. Nghiên cứu hiệu quả của SkQ1 đối với tế bào cơ thể người
Nghiên cứu hiệu quả nuôi cấy tế bào của SkQ1 đã ghi nhận hiệu quả bất ngờ. Kết quả nghiên cứu cho thấy điều trị tế bào bằng SkQ1 làm tăng kích cỡ (mức nhân rộng) và số vị trí mà tế bào bám dính vào chất nền (“tăng cường sức mạnh” cho các khung xương tế bào protein).
4, Khả năng thẩm thấu của SKQ1
SKQ1- chất chống ô xy hóa hoàn hảo, được thí nghiệm đánh giá khả năng hoạt tính trong ống nghiệm trong hệ thống phi sinh học đơn giản. Đầu tiên, khả năng thẩm thấu qua màng của SKQ được kiểm nghiệm qua mẫu màng lipid kép phẳng (BLM – planar artificial bilayer lipid membranes (BLM) model). Các thí nghiệm được thực hiện với thiết bị “màng đen” độc đáo được phát triển tại Viện sinh hóa vật lý trị liệu, thuộc đại học bang Moscow, Nga.
Các thí nghiệm “màng đen” chỉ ra những hợp chất được tổng hợp thực sự có khả năng thẩm thấu qua màng lipid. Thí nghiệm của Severina trên BLM đã ghi nhận SkQR1 và SKQ3 có khả năng thẩm thấu cao nhất. Đối với SkQ1, MitoQ và DMQ khả năng thẩm thấu qua màng đen phần nào thấp hơn. Các thí nghiệm cũng chỉ ra SkQ1 là chất chống oxy hóa có hiệu quả cao nhất trong các hợp chất thí nghiệm.
5、SKQ1 trong Lão khoa
Một chuỗi thí nghiệm đã được thực hiện trên những cá thể chuột OXYs mắc bệnh lão hóa sớm (Hutchchinson Gilford Progeria Syndrome (HGPS)) do mất cân bằng oxy hóa liên tục. Điểm khác biệt ở những cá thể chuột này là một số bệnh tuổi già đã phát triển chỉ trong vòng vài tháng sau khi sinh ra. Những bệnh này bao gồm đục thủy tinh thể, loạn dưỡng võng mạc, loãng xương, xâm lấn tuyến ức, giảm động lực tình dục ở con đực và suy giảm trí nhớ. Các thí nghiệm được thực hiện bởi N.G. Kolosova và các đồng nghiệp (Viện tế bào và di truyền học, Ban Siberian thuộc Học viện khoa học Nga) đã cho kết quả ghi nhận sự phát triển của các yếu tố lão hóa ở trên đã bị làm chậm lại đáng kể khi sử dụng 50−250nmol SkQ1/kg/ngày cùng với chế độ cân bằng dinh dưỡng giầu vitamin B3.
Chuỗi thí nghiệm dài hạn khác được thực hiện bởi nhóm khoa học củaV.N.Anisimov (Viện Ung thư N. N.Petrov, St. Petersburg) nghiên cứu hiệu quả của SkQ1 đối với sự lão hóa trên cá thể chuột lai bình thường. Sử dụng SkQ1 trọn đời với liều 5nmol/kg/ngày kèm uống đủ nước, làm giảm đáng kể tỷ lệ tử vong liên quan đến tuổi ở động vật bình thường. Hiệu quả rõ rệt nhất ghi nhận ở 20% các cá thể đã chết với tuổi đời đã tăng lên 2.5 lần, 50% số cá thể đã chết ghi nhận tuổi thọ tăng 30%, và 20% ghi nhận gia tăng khoảng 10% tuổi thọ. Nói cách khác, SkQ1 gây ra cái gọi là tái cấu trúc đường cong tử vong ở chuột. Xu hướng tương tự cũng được ghi nhận trong các thí nghiệm với nấm (podospora, Hình 3) và động vật không xương sống (Côn trùng – Ruồi giấm, Hình 4; Giáp xác – Rận nước, Hình 5) đều có sự gia tăng tuổi thọ nhờ điều trị SkQ1 trọn đời.
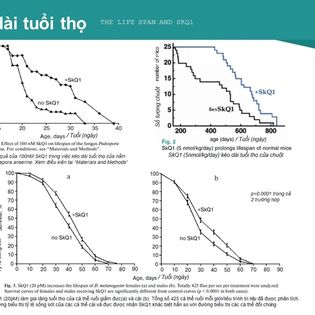
Trị liệu trọn đời bằng SkQ1 không chỉ kéo dài tuổi thọ của động vật mà còn giúp nâng cao “chất lượng cuộc sống”. Ví dụ, thông thường phần lớn cá thể chuột cái già có chu kỳ động đực không đều vào khoảng 22 tháng tuổi. Trong thí nghiệm của V.N. Anisimov sử dụng SkQ1 để điều trị trên các cá thể chuột (không áp dụng trên cá thể đối chứng), đã giữ được chu kỳ thường xuyên tượng tự như ở động vật trẻ.
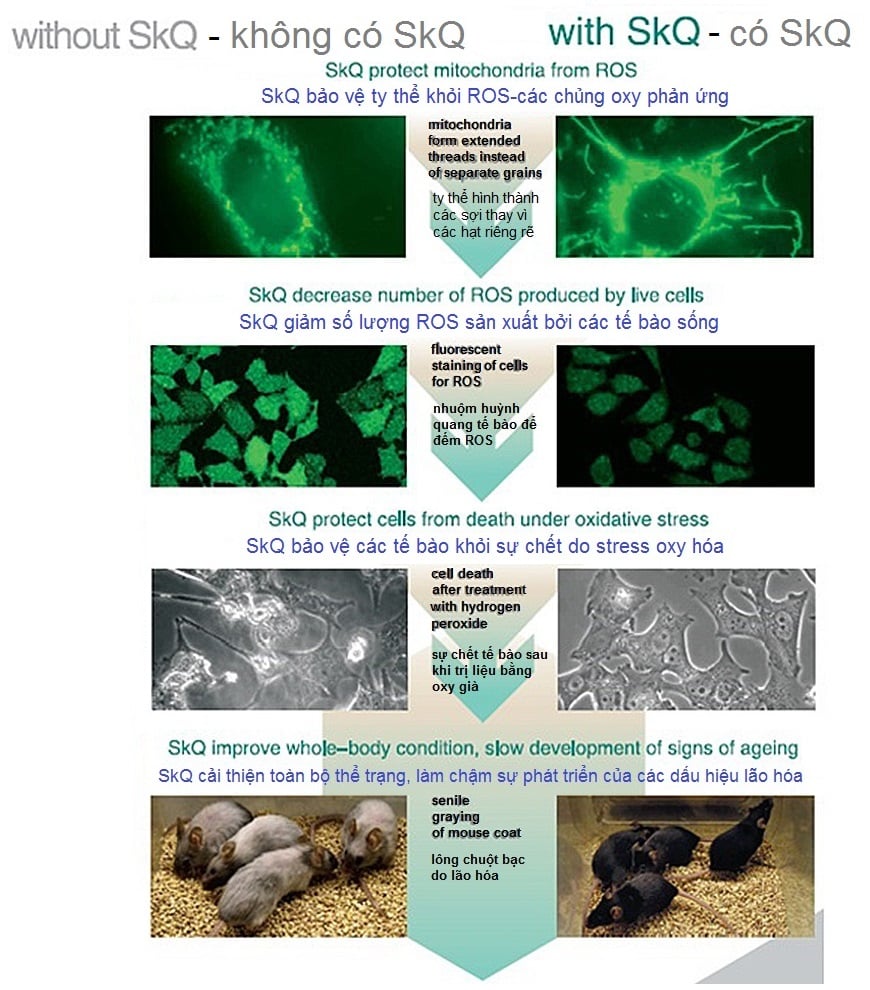
6, Chất chống oxy hóa hoàn hảo
Đã có giả thuyết rằng chính những tổn thương oxy hóa tích lũy theo tuổi trong sinh vật sống là nguyên nhân chính của quá trình lão hóa. Có thể kiểm soát sự tích lũy thiệt hại này thông qua việc kiểm soát mức độ sản sinh của các gốc tự do (các chủng oxy phản ứng) trong ty thể. Điều quan trọng phải nhấn mạnh rằng việc sản xuất các gốc tự do phải được kiểm soát, không được dừng lại, để các gốc tự do vẫn có thể thực hiện một số chức năng sinh học quan trọng. Có thể kiểm soát sự tích lũy tổn thương này thông qua việc kiểm soát mức độ sản sinh các gốc tự do trong ty thể. Điều quan trọng cần nhấn mạnh là sự sản xuất các gốc tự do cần được kiểm soát chứ không phải dừng lại, vì các gốc tự do vẫn cần thiết để thực hiện một số chức năng sinh học quan trọng. Ví dụ như chống nhiễm khuẩn và virus, trực tiếp thông qua loại bỏ mầm bệnh và gián tiếp thông qua điều chỉnh các phản ứng miễn dịch kích thích sự chết tế bào đối với viêm nhiễm.

Bôi SkQ1 lên bề mặt da mềm phía trong cánh tay, liều dùng: 3 giọt/ngày vào buổi sáng. Chúng tôi khuyến nghị bắt đầu sử dụng 1 lần/ngày, và tăng lên 2 lần/ngày sau 1 tháng nếu cần thiết. Nhu cầu dùng SkQ1 có khác nhau riêng ở từng người, tùy thuộc có 1 bệnh hoặc kèm nhiều bệnh nền phối hợp với mức độ nặng nhẹ khác nhau của từng bệnh. Nếu chỉ dùng chống thoái lão hóa (không có bệnh kết hợp) thì bôi SkQ1 cách ngày/lần. Nên khám bệnh kiểm tra xét nghiệm tổng thể trước và 3 tháng sau khi sử dụng SkQ1 để so sánh hiệu quả của SkQ1 cùng cảm nhận chuyển biến trên lâm sàng. Trong vòng vài tuần, toàn bộ tế bào trong cơ thể sẽ bắt đầu tái tạo và sửa chữa. Bạn sẽ dần cảm thấy sự trẻ hóa rõ rệt cả bên trong và bên ngoài cơ thể, khi mọi người vẫn hằng ngày chịu tổn thương vì sự tấn công của các gốc tự do trong mỗi tế bào, bạn sẽ có SkQ1 làm lá chắn vững chãi chống lại sự tàn phá của thời gian.
Sử dụng trong vòng 3 tháng. Lưu giữ ở trong tủ lạnh hoặc ở nhiệt độ phòng dưới 25 o C
PURECELL – SkQ1
“Lá chắn chống tổn thương do các Gốc tự do”
Trong cơ thể chúng ta, tất cả các tế bào đều cần năng lượng để hoạt động. Năng lượng được sản xuất từ nhà máy năng lượng nằm ngay trong mỗi tế bào (là các Ty thể). Một số loại tế bào cần nhiều năng lượng như: tim, cơ và não có đến hàng trăm nhà máy năng lượng. Tuy nhiên cũng như các nhà máy năng lượng, những cỗ máy siêu nhỏ sản xuất năng lượng này cũng sản sinh ra chất thải độc hại – Các Gốc tự do!
Các gốc tự do này không cân bằng và trở nên rất bất ổn. Nó luôn luôn tìm cách chiếm đoạt điện tử mà nó thiếu từ các phân tử khác, lần lượt tạo ra một chuỗi những gốc tự do mới, làm tổn thương màng tế bào, phản ứng mạnh với các phân tử protein, gây rối loạn cho sinh hoạt bình thường của tế bào, phá hủy và giết chết các tế bào. Đây chính là quá trình LÃO HÓA.
Số lượng của các gốc tự do tích lũy theo tuổi. Quá tải đối với hệ thống chống các gốc tự do của cơ thể, gây tác hại ngày càng nghiêm trọng. Cùng với các tác động từ môi trường sống, ô nhiễm, khói bụi, thực phẩm, cuộc sống căng thẳng v.v…cũng là lúc “đội quân” gốc tự do “thừa cơ” gia tăng nhanh chóng, thúc đẩy sự lão hóa và làm các bệnh lý sớm phát triển. Gốc tự do là nguồn gốc của sự lão hóa và hơn 100 bệnh lý nguy hiểm như: tim mạch, viêm khớp, bệnh dạ dày – ruột, đục thủy tinh thể, thoái hóa võng mạc, tiểu đường, ung thư, Parkinson, Alzheimer, suy giảm hệ thống miễn dịch..vv…
Sau hơn 10 năm nghiên cứu khoa học dựa trên công nghệ hóa học đạt giải thưởng Nobel, PURECELL đã chính thức ra mắt Kem dưỡng da – Tinh chất Chống thoái lão hóa tế bào toàn thân SKQ1 – sản phẩm chống ôxy hóa DUY NHẤT trên thế giới được chứng
minh khoa học là có khả năng DỪNG sự sản sinh các gốc tự do trong ty thể của tất cả các tế bào có trong cơ thể.

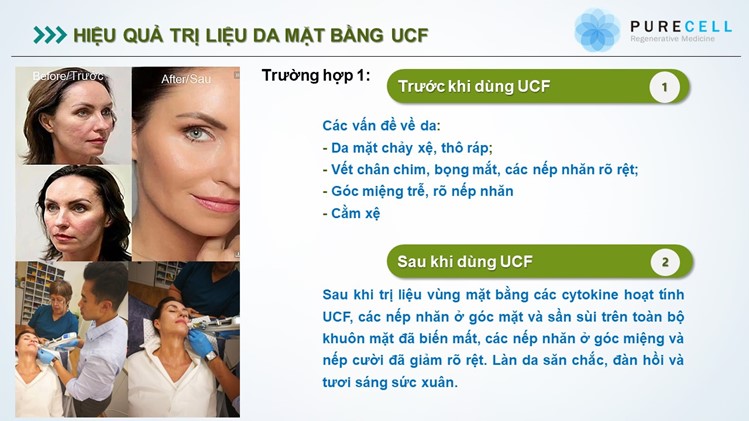
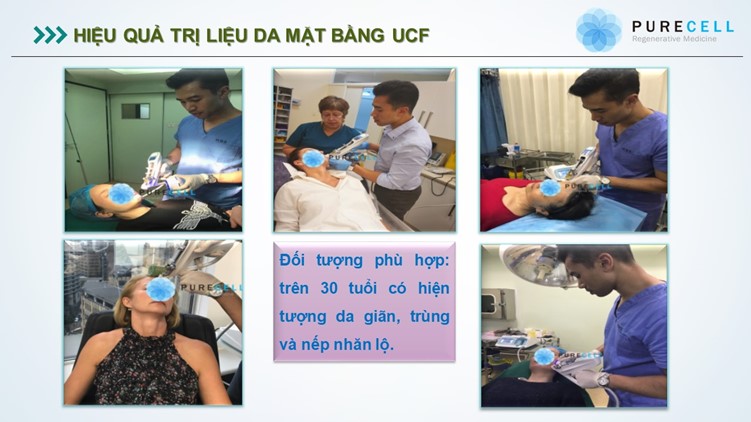
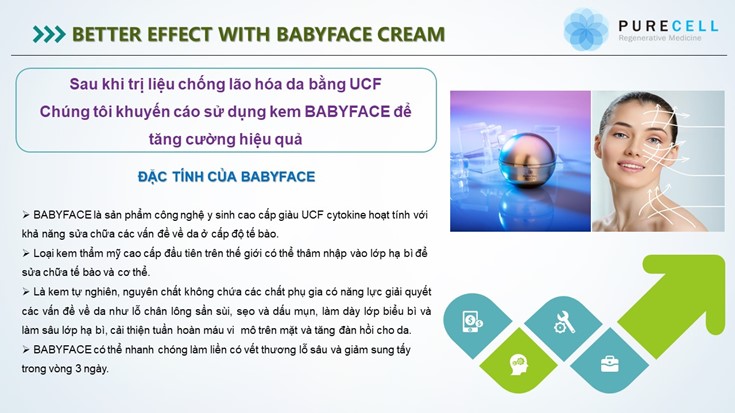
UCF BABYFACE – Kem Dưỡng Trẻ Hóa Da Mặt
Sáng chế đặc biệt UCF có khả năng thẩm thấp và hấp thụ cao rất cao qua da, có thể đánh thức sức sống của tế bào, cho bạn cảm nhận và tận hưởng sự lão hóa ngược, mang làn da em bé trở lại với bạn từng ngày.
Giới thiệu
– BABYFACE là kem sửa chữa tận gốc tế bào đã đăng ký bản quyền quốc tế.
– BABYFACE chứa nguyên liệu “sống” UCF từ hơn 700 Cykokine trong máu
cuống rốn trẻ sơ sinh, cytokine hoạt tính tái tạo mạnh mẽ nhất của con người.
BABYFACE thẩm thấu hiệu quả qua lớp hạ bì tìm đến căn nguyên gây lão hóa, các tế bào và mô bị tổn thương để sữa chữa phục hồi, kích thích các nguyên bào sợi trong lớp hạ bì sản xuất collagen và các sợi đàn hồi, phục hồi sức sống cho các tế bào da.
– BABYFACE tổng hợp các nguyên liệu dưỡng da tự nhiên như hyaluronic acid và Vitamin E.
– BABYFACE hoàn toàn an toàn, không gây kích ứng hay tác dụng phụ, sửa chữa các tế bào tổn thương và lão hóa, khôi phục các dưỡng chất tự nhiên và collagen cho da, giúp làn da luôn mềm mịn tươi trẻ.
Cho tới nay, BABYFACE là sản phẩm chống lão hóa ở mức độ tế bào hiệu
quả cao nhất. BABYFACE đã đạt chuẩn cao nhất của Úc là NATA, đảm bảo độ tiệt trùng theo cGMP và kiểm định an toàn chống dị ứng.
BABYFACE là kem dưỡng da tươi cần giữ lạnh để đảm bảo trải nghiệm tự
nhiên, an toàn, êm dịu và hiệu quả nhất.
Chi tiết
Tế bào cơ thể người có số lượng Cytokines hạn chế, là phân tử tín hiệu sinh hóa điều khiển một loạt các hoạt động thể chất. Chất lượng những Cytokine thuyên giảm khi chúng già đi. Chuỗi Cytokine trẻ nhất có trong máu cuống rốn của trẻ sơ sinh vô cùng khác biệt với chuỗi Cytokine trong cơ thể người trưởng thành. Những “Cytokine trẻ” này sẽ tạo ra năng lực mạnh mẽ nhất để tìm và sửa chữa những mô hư hỏng dựa trên trình tự ưu việt nhất, thúc đẩy sự phát triển khỏe mạnh và duy trì đỉnh cao sức khỏe.
Sức mạnh của BABYFACE là hiệu quả hóa sinh chống lão hóa đột phá hơn
hẳn so với tế bào gốc của người trưởng thành, và chỉ có trong máu cuống rốn sơ sinh, nơi chứa tổ hợp chuỗi Cytokine đầy đủ và mạnh mẽ nhất trong suốt vòng đời con người. Cùng với sự kiểm định bởi đội ngũ các nhà khoa học và cơ quan thẩm
quyền về y học tái tạo, cytokine sử dụng đảm bảo đạt chuẩn và cấp bằng sáng chế theo tiêu chuẩn cao nhất của FDA Mỹ và TGA của Úc, dẫn đầu cuộc cách mạng mới trong lĩnh vực chống lão hóa da mặt.
Mỗi hộp kem đều được sản xuất dành riêng cho từng khách hàng, sử dụng hệ thống sửa chữa tự thân hiệu quả nhất của con người, giúp bạn trở về “chế độ nhà sản xuất”, mang đỉnh cao tuổi trẻ trở lại với làn da của bạn.





UCF Trong Điều Trị Tăng Huyết Áp
Hiệu quả của UCF đối với Tăng huyết áp và các trường hợp liên quan
I. Tăng huyết áp
Tăng huyết áp hay còn gọi là huyết áp tăng, là hiện tượng áp lực trên thành mạch máu thường xuyên cao hơn cao hơn mức bình thường trong quá trình lưu thông máu. Tăng huyết áp thường được gọi là kẻ sát nhân thầm lặng. Ở hầu hết các bệnh nhân, huyết áp tăng có thể xảy ra ngay trong những lúc hoàn cảnh bình thường nhất. Nếu thành mạch máu ở trong trạng thái áp lực cao hơn bình thường trong thời gian dài có thể dẫn tới một loạt bệnh nghiêm trọng như: bệnh tim, bệnh mạch vành,
đột quỵ, suy thận, tổn thương đáy mắt….dẫn tới mù lòa.
Tăng huyết áp có thể kiểm soát được. Nhưng là loạt bệnh không chữa khỏi được và cần duy trì điều trị suốt đời. Một khi điều trị bắt đầu, bệnh nhân không thể dừng hoặc thay đổi thuốc khi không có ý kiến của bác sĩ. Nếu bệnh nhân có tiền sử bệnh tăng huyết áp và đang sử dụng thuốc hạ huyết áp, thì
khám sức khỏe định kỳ với bác sĩ là việc thiết yếu để theo dõi và duy trì huyết áp ổn định.
II. Cơ chế và hiệu quả của UCF đối với tăng huyết áp
Tăng huyết áp là một loại hội chứng lâm sàng, đặc trưng bởi sự gia tăng huyết áp động mạch toàn thân (huyết áp tâm thu và / hoặc huyết áp tâm trương), có thể kèm theo tổn thương chức năng hoặc hữu cơ đối với: tim, não, thận và các cơ quan khác….
Huyết áp trong cơ thể con người được điều chỉnh bởi nhiều yếu tố. Một trong những yếu tố quan trọng nhất của quá trình lão hóa là sự suy giảm khả năng của các tế bào mô nội mạch máu của con người để duy trì khả năng co bóp và giãn nở trong điều kiện sống bình thường. Sự suy giảm này là do tổn thương gây ra bởi các
gốc tự do hoặc các chủng oxy phản ứng (ROS). Quá trình lão hóa gây ra sự suy giảm về khả năng khôi phục các tế bào cơ thể. Tương tự như các tế bào khác trong cơ thể, những tế bào gốc này cũng bị suy yếu và tổn thương do lão hóa.
Tăng huyết áp là loại bệnh mạn tính phổ biến của lão hóa và là một trong những yếu tố chính gây ra sự phát triển của bệnh tim mạch. Các phương pháp trị liệu
truyền thống (thay đổi lối sống, chế độ ăn cân bằng dinh dưỡng, và sử dụng các loại thuốc giảm huyết áp) không thể loại bỏ hoàn toàn các triệu chứng tăng huyết áp. UCF chứa các cytokine kích thích các mạch máu phát triển. Khi UCF lưu thông khắp hệ tuần hoàn, nó có thể thúc đẩy tăng sinh mạch máu, tăng độ đàn hồi mạch
máu và cải thiện tăng huyết áp. Với tác dụng phục hồi và tái tạo mạnh mẽ, UCF, một sản phẩm cytokine có nguồn gốc từ huyết tương máu cuống rốn trẻ sơ sinh, có thể sửa chữa, tăng tính đàn hồi mạch máu, cải thiện các triệu chứng tăng huyết áp và ngăn ngừa các biến chứng của tăng huyết áp.
III. Ca điều trị tăng huyết áp bằng UCF
Tình trạng bệnh: Ông H là chủ một công ty dược phẩm lớn. Ông có các triệu chứng của tăng huyết áp do áp lực công việc và áp lực tinh thần trong thời gian dài với tiền sử tăng huyết áp hơn 5 năm. Ông phải dùng thuốc hạ huyết áp quanh năm để kiểm soát huyết áp.
Kết quả khám sức khỏe của ông H ngày 11/08/2017
Chẩn đoán: Kết quả kiểm tra huyết áp của ông H vào năm 2017, ghi nhận huyết áp tâm thu của ông là 141mmHg và huyết áp tâm trương là 76mmHg. Do dùng thuốc giảm huyết áp trong thời gian dài, mặc dù huyết áp không tăng quá, ông vẫn
có thể được chẩn đoán là mắc bệnh tăng huyết áp.
Kế hoạch trị liệu dùng UCF: Vào tháng 8 năm 2017, Bác sĩ Ian Chinsee, chuyên
gia y tế chủ chốt của Purecell đã xây dựng phác đồ trị liệu cho ông H dựa trên kết quả khám sức khỏe và tình trạng thể chất. Cùng trong tháng 8, ông H đã thực hiện trị liệu bằng UCF toàn thân chống lão hóa.
Hiệu quả trị liệu: Sau khi ông H thực hiện trị liệu bằng UCF toàn thân, ông H đã điiều chỉnh thói quen sinh hoạt và ăn uống, Bác sĩ Ian Chinsee cũng khuyên ông dừng uống thuốc giảm huyết áp trong 3 tháng.
Kết quả đáng ngạc nhiên, 1 tháng sau khi ngưng sử dụng thuốc, huyết áp của ông H giảm từ 141/76 mmHg xuống còn 116/67mmHg. Kết quả kiểm tra sức khỏe ông H sau 3 tháng trị liệu toàn thân với UCF ghi nhận huyết áp ổn định ở 119/67mmHg mà không cần thuốc hạ huyết áp.
Theo dõi kết quả trị liệu: Sau 2 năm trị liệu với UCF, theo sổ theo dõi sức khỏe của ông H, ông không hề sử dụng bất cứ loại thuốc hạ huyết áp nào, và huyết áp của ông vẫn duy trì ở mức ổn định. Kết quả khám sức khỏe của ông H vào
14/8/2019, huyết áp của ông ở mức 122/77 mmHg.
Thêm vào đó, ông H mắc tiểu đường ở giai đoạn biến chứng sớm bàn chân tiểu đường. Sau khi trị liệu bằng UCF, không chỉ tình trạng tăng huyết áp được cải thiện, mà nhờ điều trị toàn thân bằng UCF (chứa các chuỗi cytokine đầy đủ, kích thích tăng sinh mạch máu) đã có hiệu quả trị liệu tốt đối với các vết loét tiểu đường và loét cục bộ gây ra bởi thiếu máu các chi ở xa (bàn chân). Vì vậy, bàn chân tiểu đường của ông H cũng đã được kiểm soát và cải thiện tốt, chưa có dấu hiệu tái
phát.
Kết quả khám sức khỏe của ông H ghi nhận chỉ số cung lượng tim của ông ở mức 3.8L / min * m 2 . Chức năng tim của ông H 62 tuổi tốt hơn chức năng tim của con
gái 32 tuổi của ông. (heart function index is 3.4L / min * m 2 ).
Chỉ số cung lượng tim của ông H so với con gái ông (kết quả của ông H ở
trên), kết quả khám sau 2 năm trị liệu bằng UCF, tháng 8/2019
Chỉ số cung lượng tim của ông H so với con gái ông (kết quả của ông H ở
trên), kết quả khám sau 2 năm trị liệu bằng UCF, tháng 8/2019
UCF Trị Tiểu Đường Và Các Loại Biến Chứng
UCF- hỗ trợ điều trị Tiểu đường loại 2 và bàn chân của người mắc bệnh tiểu đường
I. Tiểu đường loại 2
Bệnh tiểu đường loại 2 là loại tiểu đường phổ biến nhất, còn được gọi là bệnh tiểu đường khởi phát ở người lớn. Bệnh này gây ra do rối loạn chức năng miễn dịch, nhiễm trùng vi khuẩn, yếu tố di truyền, các độc tố, các gốc tự do, yếu tố tinh thần và các yếu tố gây bệnh khác (tác động lên cơ thể dẫn đến giảm chức năng tiểu đảo tụy, kháng insulin, v.v.). Bệnh tiểu đường loại 2 là một loại rối loạn chuyển hóa liên quan đến đường, protein, chất béo, nước, chất điện giải và không thể chữa khỏi bằng các phương pháp điều trị hiện tại. Nguyên nhân của bệnh tiểu đường loại 2 rất phức tạp. Những người không được chẩn đoán rõ ràng các loại bệnh tiểu đường khác (tiểu đường loại 1, tiểu đường loại đặc biệt và tiểu đường thai kỳ) có thể tạm thời được phân loại là tiểu đường loại 2.
II. Cơ chế hoạt động của UCF đối với tiểu đường loại 2 và bàn chân bị tiểu đường
UCF – sản phẩm cytokine trích xuất từ huyết tương máu cuống rốn trẻ sơ sinh làm việc bằng cách đảo ngược sự lão hóa của các tế bào cơ thể. Bệnh tiểu đường loại 2 liên quan đến việc giảm độ nhạy cảm của các tế bào cơ thể với insulin. Sự suy giảm này gây ra bởi lối sống (chế độ ăn uống, căng thẳng, vv…) và quá trình lão hóa tế bào. UCF có thể kích thích tái tạo tế bào và tăng độ nhạy insulin.
Quá trình này một phần do khả năng quần thể tế bào gốc của cơ thể con người giảm khả năng sửa chữa thực sự hiệu quả. Tương tự như các tế bào ở các bộ phận khác của cơ thể, các tế bào gốc này cũng bị tổn thương trong quá trình lão hóa. Khi các UCF cytokine vào cơ thể, chúng có thể kích hoạt và sửa chữa các tế bào gốc bị tổn thương trong cơ thể. Đồng thời, các biến chứng tiểu đường như loét chi ở xa (bàn chân), tình trạng các vết loét không lành cục bộ xuất hiện ở bàn chân do máu cung cấp kém (thiếu
máu cục bộ – ischemia). UCF chứa nhiều loại cytokine bao gồm VEGF có khả năng kích thích tăng sinh các mạch máu tân tạo, hỗ trợ sửa chữa những vết loét ở bàn chân.
1. Năng lực sửa chữa mạnh mẽ của UCF trong huyết tương máu cuống rốn trẻ sơ sinh
Giáo sư Andrew French – nhà khoa học chủ chốt – nhà phát minh UCF của PURECELL đã thí nghiệm và tìm ra: máu càng trẻ, các chuỗi cytokine càng khỏe mạnh. Những chuỗi cytokine đầy đủ được chiết xuất từ huyết tương máu cuống rốn trẻ sơ sinh dùng để nuôi lớn và sửa chữa trẻ sơ sinh, trong khi cytokine trong máu người trưởng thành lại bao gồm các chuỗi thúc đẩy quá trình viêm nhiễm và tuổi già. Sản phẩm đã được cấp bằng sáng chế toàn cầu UCF cytokine sử dụng huyết tương máu cuống rốn trẻ sơ sinh là nguyên liệu thô để thúc đẩy tăng trưởng và sửa chữa.
2. Kích thích tế bào gốc tự thân tạo hiệu quả sửa chữa
Năng lực sửa chữa mạnh mẽ của cơ thể con người đến từ chức năng sửa chữa của tế bào gốc trong chính cơ thể. Với tuổi tác ngày càng tăng, tế bào gốc trong cơ thể sẽ bị tổn thương và đi vào trạng thái ngủ đông. Điều quan trọng là phải sửa chữa và kích hoạt tế bào gốc ở người để tự sửa chữa và điều hòa chức năng sinh lý.
3. Điều chỉnh hệ nội tiết con người
Cơ thể là một tổng thể cấu trúc và chức năng bao gồm nhiều hệ thống. Ba hệ thống phân bổ rộng là hệ thần kinh, miễn dịch và nội tiết đóng vai trò quan trọng trong việc điều chỉnh các chức năng của từng hệ thống, tham gia vào bảo vệ cơ thể và kiểm soát sự tăng trưởng và phát triển của cơ thể.
Bệnh tiểu đường là một bệnh chuyển hóa mãn tính, có liên quan mật thiết đến sự rối loạn chức năng của hệ thống nội tiết của con người. Với tác dụng sửa chữa và tái tạo mạnh mẽ, UCF có thể điều tiết các mức độ nhất định tới chức năng của hệ thống nội tiết, điều chỉnh các bất thường trong chuyển hóa của cơ thể, loại bỏ các triệu chứng của bệnh tiểu đường loại 2 ở một mức độ nhất định, ngăn ngừa các biến chứng của bệnh tiểu đường cấp tính và mạn tính, và cải thiện các triệu chứng của bệnh tiểu đường biến chứng bàn chân.
4. Mức độ an toàn và hiệu quả của UCF
UCF đã được cấp đầy đủ các giấy phép pháp lý do chính phủ Úc phê duyệt từ sản xuất đến kinh doanh các sản phẩm UCF. Toàn bộ quy trình đạt các chứng nhận tiêu chuẩn chất lượng quốc tế cao nhất. UCF đã được chứng minh về hiệu quả sửa chữa chất lượng với tác dụng phụ tối thiểu.
III. Các ca điều trị hỗ trợ tiểu đường loại 2 bằng UCF
Trường hợp 1
u Tình trạng bệnh: Ông W, từ khi bắt đầu chẩn đoán mắc tiểu đường loại 2 vào tháng 9 năm 2015 tới tháng 12 năm 2018, có chỉ số đường huyết lúc đói cao nhất: 10,50 mmol/L, và chỉ số đường huyết hai giờ sau ăn cao tới: 20,50 mmol/L. Suốt 5 năm, ông W đã dùng liên tục một loạt các loại thuốc giảm đường huyết nhưng mức đường máu không giảm. Một khi dừng thuốc sẽ ảnh hưởng đến cuộc sống thường ngày của ông, bao gồm các ảnh hưởng xấu đến tinh thần, tâm trạng, chất lượng giấc ngủ, và gây ra một số vấn đề.
Chỉ số đường huyết lúc đói: 10,50 mmol/L, ngày 26/9/2015
Chỉ số đường máu 2 giờ sau ăn: 20,50 mmol/L, ngày 26/9/2015
Chỉ số đường huyết lúc đói: 8,7 mmol/L, ngày 24/1/2016
Chỉ số đường máu 2 giờ sau ăn: 15,10mmol/L, ngày 3/7/2016
Chẩn đoán: Ông W có tiền sử 5 năm bệnh tiểu đường. Mức đường huyết lúc đói, đường huyết 2 giờ sau khi ăn và chỉ số huyết sắc tố glycated đều tăng, kèm theo mệt mỏi nhẹ. Ông đã được chỉ định dùng thuốc uống dài hạn để kiểm soát lượng đường trong máu. Ông là bệnh nhân tiểu đường loại 2 điển hình.
Chỉ số huyết đo sắc tố glycated: 6.5%, ngày 31/12/2018
Kế hoạch trị liệu bằng UCF: Tháng 1 năm 2019, sau khi kết quả khám sức khỏe của ông W được chuyên gia y tế chủ chốt của Purecell, Bác sĩ Ian Chinsee đã kiểm tra và xây dựng phác đồ trị liệu cho ông W dựa trên tình trạng thể chất và các kết quả xét nghiệm. Ngày 11/1/2019 ông W tiếp nhận điều trị toàn thân UCF.
Hiệu quả điều trị: 2 tháng sau khi điều trị toàn thân bằng UCF, theo phản hồi của ông W, chất lượng giấc ngủ và thời gian ngủ của ông đã được cải thiện rất nhiều, thời gian đi vào giấc ngủ đã ngắn hơn, sinh lực và năng lượng được cải thiện với tinh thần sảng khoái. Theo khuyến nghị của Bác sĩ Chinsee, ông W đã tập thể dục bằng cách đi bộ hàng ngày và điều chỉnh chế độ ăn uống. Sau thời gian chữa bệnh bằng UCF kết thúc, ông có thể giảm sử dụng các loại thuốc hạ đường huyết.
Ngày 5/8/2019, ông W gửi phản hồi tới PURECELL thông báo đã ngưng dùng thuốc hạ đường huyết hơn 50 ngày và mức đường huyết khi đói của ông đã về mức bình thường. Kết quả kiểm tra sức khỏe ngày 18/07/2019 ghi nhận chỉ số này ở mức bình thường: 5.9 mmol/L. Ông và gia đình vô cùng vui mừng.
Chỉ số đường huyết lúc đói: 5,9 mmol/L, ngày 18/07/2019
Trường hợp 2
Bàn chân tiểu đường
Mô tả: Ông H là chủ một công ty dược phẩm lớn. Ông có các triệu trứng của bệnh tăng huyết áp, do áp lực công việc và áp lực tinh thần trong thời gian dài. Ông không chỉ bị tiểu đường mà còn có tiền sử tăng huyết áp hơn 5 năm. Ông phải dùng thuốc hạ đường huyết và hạ huyết áp quanh năm để kiểm soát các chỉ số.
Chẩn đoán: kết quả khám sức khỏe của ông H vào năm 2017 ghi nhận chỉ số huyết sắc tố glycated: 8.6%, đường huyết: 11,9 mmol/L, và glycated albumin lên tới: 25,6%. Do tiểu đường lâu năm, xuất hiện biến chứng tiểu đường bàn chân, với các vết loét ở bàn chân sẽ lan dần lên chân.
Kết quả khám sức khỏe trước khi điều trị với UCF cho thấy tăng đường huyết bất thường, ngày 11/8/2017
Kế hoạch trị liệu: Vào tháng 8 năm 2017, Bác sĩ Ian Chinsee, chuyên gia y tế chủ chốt của Purecell đã xây dựng phác đồ trị liệu cho ông H dựa trên kết quả khám sức khỏe và tình trạng thể chất. Cũng trong tháng 8, ông H đã thực hiện trị liệu UCF toàn thân chống lão hóa.
Ông H. tiến hành trị liệu toàn cơ thể, tháng 8 năm 2017
Phản ánh hiệu quả trị liệu: Sau khi điều trị UCF toàn thân, tình trạng tăng huyết áp đã được cải thiện. UCF chứa cytokine thúc đẩy tăng sinh các mạch máu tân tạo, có khả năng sửa chữa tốt hơn đối với các vết loét do bệnh tiểu đường và loét cục bộ do thiếu máu tới các chi xa (bàn chân). Nhờ vậy, bàn chân bị ảnh hưởng tiểu đường của ông H đã được kiểm soát và cải thiện, và tới nay chưa bị tái phát.
NAD+ (Chất Làm Chậm Quá Trình Lão Hóa Tế Bào)
Sáng Chế NAD+
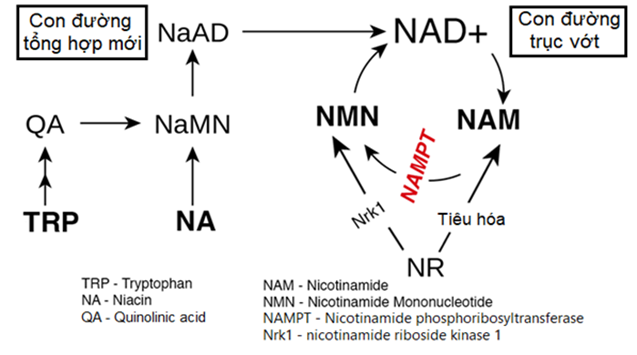
1. Mối quan hệ giữa NR (vitamin B3), NMN (tiền chất NAD+),
NAD+ (Chất làm chậm quá trình lão hóa tế bào)
Đầu tiên các đại phân tử NR được chuyển đổi thành NMN và cuối cùng chuyển đổi thành NAD+. NMN là tiền thân NAD+. Mục tiêu cuối cùng của NMN là để cải thiện NAD+ trong cơ thể.
Chất làm chậm quá trình lão hóa tế bào là NAD+, có thể sản xuất bởi NMN. NR cũng có thể sản xuất ra NAD+, những NR phân tử lớn có thể biến đổi thành NHM để tổng hợp NAD+. NMN là hợp chất trung gian giữa NR và NAD+, nghĩa là NR phải trở thành NMN trước khi biến đổi thành NAD+.
NR là một dạng vitamin B3 và được coi là chất tiền thân hiệu quả nhất nhờ khả năng tiết kiệm năng lượng để biến đổi thành NAD+ qua đường uống. Điều này là nhờ NR bỏ qua một bước trong quá trình sinh tổng hợp NAD+. NMH và NR ngày càng được sử dụng nhiều để bổ sung NAD+ do NR được biết tới có khả năng làm tăng mức NAD+ nhưng không thể vượt qua tế bào mà phải biến đổi trước thành NMN, chỉ khi đó NMN mới có thể biến đổi thành NAD+.
2. Mối quan hệ bổ trợ giữa NAD+ và SkQ1
Khi chúng ta già đi, nhiên liệu yêu cầu bởi ty thể “nhà máy năng lượng” tế bào ngày càng giảm đi. Nhiên liệu chính của ty thể là NAD+, trực tiếp đi vào ty thể và bắt đầu sản xuất nhiều năng lượng hơn, vì vậy cũng sản xuất nhiều phụ phẩm hơn – các gốc tự do. Vì vậy lúc này cơ thể cần nhiều chất chống oxy hóa SkQ1. Đồng thời, mức độ coenzyme NAD+ giảm 50%
NAD+ đóng vai trò rất quan trọng cơ thể. Ty thể cần NAD+ để thu nạp năng lượng từ thức ăn (cùng lúc đó sản sinh ra gốc tự do), thiết yếu cho hệ thống sửa chữa DNA của cơ thể, kích hoạt nhóm gen sirtuins (nhóm gen trường thọ), nhóm gen vô cùng quan trọng của quá trình lão hóa tế bào. Do vậy, tăng mức NAD+ giúp khôi phục và kích hoạt nhóm gen trường thọ – cơ chế chính giúp làm chậm quá trình lão hóa tế bào. Ty thể rất ít khi có NAD+, NAD+ đến từ thức ăn như: cà rốt.
Các nhà khoa học của Purecell đã phát triển NAD+ đồng thời trực tiếp giải quyết hạn chế hàng rào hấp thụ qua đường tiêu hóa bằng thẩm thấp qua da kết hợp với sử dụng chất chống oxy hóa mạnh nhất SkQ1 để trung hòa hiệu quả các gốc tự do sản sinh ra bởi NAD+.
Emsculpt (Thiết Bị Giảm Cân Không Xâm Lấn)
Sáng Chế Emsculpt
Thiết bị giảm cân không xâm lấn: Emsulpt – thiết bị vật lý trị liệu không xâm lấn duy nhất trên thế giới sử dụng để đồng thời vận động cơ và đốt cháy mỡ.
Là thiết bị đầu tiên, duy nhất của dòng thiết bị làm đẹp cơ thể mới trên thế giới. EMSCULPT đã đạt giải thưởng thiết bị sáng tạo nhất của Giải thưởng Sức khỏe và Vẻ đẹp Mỹ năm 2018.
Emsculpt cho phép các cơ co bóp 20.000 lượt chỉ trong vòng 30 phút nhờ nguyên lý tập trung sóng điện từ, tương đương với 20.000 lần gập cơ bụng. Công nghệ tuyệt diệu này giúp những người tìm kiếm cái đẹp giảm béo cục bộ và xây dựng khối cơ nền dưới lớp mỡ, cho bạn một cơ thể thon chắc khỏe mạnh hơn. Bụng, đùi, tay, mông những khu vực mỡ tích tụ đều có thể áp dụng.
Emsculpt nhắm vào phát triển cơ vùng bụng, đốt cháy mỡ và nâng dáng. Nhờ vùng điện từ mật độ cao tập trung, các cơ sẽ co rút mạnh đến 20.000 lượt mỗi lần. Nhờ vậy, các cơ có thể tái cơ cấu lại và sản xuất các chuỗi collagen và các sợi cơ mới. Người sử dụng sẽ đạt được hiệu quả tăng mật độ và khối lượng cơ chỉ trong thời gian ngắn. Không có bất cứ đau đớn nào trong toàn bộ quá trình
trị liệu ngoài cảm giác cơ co mạnh. Mỡ sẽ được loạt bỏ nhanh chóng giúp cải thiện sức khỏe thể chất và tinh thần. Hơn nữa giảm mỡ và tăng cơ sẽ hỗ trợ tốt trong việc giảm áp lực trọng lượng cho khớp gối gây ra do thừa cân. Đồng thời tăng sức khỏe cơ quanh khớp gối giúp giảm đau và giảm hao mòn khớp gối về
lâu dài.
Emsculpt sử dụng công nghệ HIFEM® (làm cơ co bóp mạnh nhiều lần trong 30 phút) đã được thử nghiệm áp dụng trong 7 nghiên cứu lâm sàng và kiểm tra sử dụng 4 biện pháp đánh giá là MRT, CT, siêu âm mà mô học đều ghi nhận hiệu quả ổn định trong tăng và giảm mỡ:
– 19% giảm mỡ dưới da
– 16% tăng trọng lượng cơ
– 11% cải thiện chức năng tâm trương trực tràng
– Kích thước vòng eo giảm trung bình 4,4 cm
– 96% người sử dụng hài lòng với kết quả trị liệu.
Ty Thể Mục Tiêu Và Sinh Bệnh Học Dựa Trên Các Loại Oxy Phản Ứng (Các Gốc Tự Do) Trong Bệnh Thận Do Tiểu Đường
Runa Lindblom,1,2,3,4 Gavin Higgins,1,2,4,5 Melinda Coughlan,1,2,3,6,7 Và Judy B. De Haan2,7,8
-
- Phòng thí nghiệm Glycation, Dinh dưỡng và Chuyển hóa, Viện Tim mạch và Tiểu đường Baker IDI, Melbourne, Victoria, Úc
2. Phòng Biến chứng Tiểu đường, Viện Tim mạch và Tiểu đường Baker IDI, Melbourne, Victoria, Australia
3. Khoa Y, Trường Lâm sàng Trung tâm, Đại học Monash, Melbourne, Victoria, Australia
4. Đóng góp bình đẳng của các tác giả đầu tiên
5. Khoa Hóa sinh và Sinh học phân tử, Đại học Monash, Clayton, Victoria, Australia
6. Khoa Dịch tễ học và Y tế Dự phòng, Đại học Monash, Melbourne, Victoria, Australia
7. Đóng góp bình đẳng của các tác giả cấp cao
8. Phòng thí nghiệm Stress Oxy hóa, Viện Tim mạch và Tiểu đường Baker IDI, Melbourne, Victoria, Australia
Địa chỉ liên hệ với: Judy B. de Haan, Trưởng Phòng thí nghiệm Stress Oxy hóa, Phòng Biến chứng Tiểu đường, Viện Tim mạch và Tiểu đường Baker IDI, 75 Đường Thương mại, Melbourne, Victoria 3004, Australia, e-mail: judy.dehaan@bakeridi.edu. au
- Phòng thí nghiệm Glycation, Dinh dưỡng và Chuyển hóa, Viện Tim mạch và Tiểu đường Baker IDI, Melbourne, Victoria, Úc
Tóm tắt
Bệnh thận do tiểu đường là một trong những biến chứng mạch máu lớn của cả tiểu đường týp 1 và týp 2. Khoảng 30% bệnh nhân tiểu đường bị biến chứng thận. Các liệu pháp lâm sàng hiện tại chỉ có thể làm giảm các triệu chứng và trì hoãn sự tiến triển của bệnh thận giai đoạn cuối chứ không thể ngăn ngừa hoặc đảo ngược bệnh. Stress oxy hóa (các gốc tự do) là một nhân tố quan trọng trong cơ chế bệnh sinh của bệnh thận do tiểu đường. Hoạt động của các loại oxy và nitơ phản ứng (ROS/NS) (các gốc tự do), là sản phẩm phụ của môi trường bệnh nhân tiểu đường, đã được tìm thấy có mối tương quan với những thay đổi bệnh lý được quan sát thấy ở thận bệnh nhân tiểu đường. Tuy nhiên, nhiều nghiên cứu lâm sàng đã thất bại trong việc chứng minh rằng liệu pháp chống oxy hóa có tác dụng bảo vệ tái tạo. Việc phát hiện ra rằng hoạt động ROS/NS gia tăng có liên quan đến rối loạn chức năng ty lạp thể, tăng cường lưới nội chất, viêm, lão hóa tế bào và chết tế bào đòi hỏi một cách tiếp cận tinh tế đối với liệu pháp chống oxy hóa. Rõ ràng là ty thể đóng một vai trò quan trọng trong việc tạo ra ROS/NS các gốc tự do và hậu quả của chúng đối với con đường tế bào liên quan đến cái chết của tế bào apoptotic ở bệnh nhân thận do tiểu đường. Quá mức các gốc tự do (oxy hóa) cũng có liên quan đến hoại tử thông qua việc gây ra quá trình chuyển đổi tính thấm của ty thể. Tổng quan này nhấn mạnh tầm quan trọng của ty thể trong việc điều chỉnh cân bằng oxy hóa khử, điều chỉnh phản ứng của tế bào đối với stress oxy hóa và ảnh hưởng đến quá trình chết của tế bào trong bệnh thận do tiểu đường. Rối loạn chức năng tế bào qua trung gian ROS/NS tương ứng với bệnh tiến triển ở bệnh nhân thận do tiểu đường và do đó đại diện cho một mục tiêu lâm sàng quan trọng. Dựa trên sự cân nhắc này, tổng quan này cũng xem xét các biện pháp can thiệp điều trị hiện tại để ngăn ngừa tổn thương do ROS/NS gây ra ở bệnh nhân thận do tiểu đường. Những biện pháp can thiệp này, chủ yếu nhằm giảm hoặc ngăn ngừa stress oxy hóa do ty thể tạo ra, cải thiện khả năng chống oxy hóa của ty thể và duy trì tính toàn vẹn của ty thể, có thể đưa ra các phương pháp thay thế để ngăn chặn hoặc ngăn ngừa bệnh thận do tiểu đường.
Chữ viết tắt:
8-OHdG–8-hydroxy-2′-deoxyguanosine; 8-oxodG–8-oxo-7,8-dihydro-2′-deoxyguanosine; ADP – adenosine diphosphate; TUỔI – sản phẩm cuối glycation nâng cao; AIF – yếu tố gây chết rụng tế bào; aPC – protein C hoạt hóa; ATM – mất điều hòa giãn mạch đột biến; ATP – adenosine triphosphate; ATR – giãn mạch thất điều và liên quan đến Rad3; BER – sửa chữa cắt bỏ cơ sở; BMF – Bcl-2 yếu tố sửa đổi; CKD – bệnh thận mãn tính; CVD – bệnh tim mạch; DIABLO – protein liên kết IAP trực tiếp với pI thấp; EMT – quá trình chuyển đổi nội mô-trung mô; EndoG – endonuclease G; ER – mạng lưới nội chất; ERK – kinase điều hòa tín hiệu ngoại bào; ESRD – bệnh thận giai đoạn cuối; ETC – chuỗi vận chuyển điện tử; FADD – protein liên quan đến FAS với vùng chết; GPx1 – glutathione peroxidase 1; H2O2 – hydro peroxide; ICR – Viện Nghiên cứu Ung thư; IDH2 – isocitrate dehydrogenase 2; IMS – không gian liên màng; MAPK – protein kinase được kích hoạt bằng mitogen; MCP-1 – protein hóa hướng động đơn nhân 1; MIF – yếu tố ức chế di chuyển đại thực bào; MIOX – myo-inositol oxyase; MOMP – tính thấm của màng ngoài ty thể; mPTP – lỗ chân lông chuyển tiếp tính thấm của ty thể; mtDNA – DNA ty thể; MTH1 – đột biến T tương đồng 1; MUTYH – tương đồng đột biến Y; NADPH – nicotinamide adenine dinucleotide phosphate hydro; NF-κB – yếu tố hạt nhân kappa-chất tăng cường chuỗi ánh sáng của các tế bào B được kích hoạt; •NO2- – nitơ dioxit; NOX–NADPH-oxidaza; NRK – thận chuột bình thường; O2•- – superoxit; OGG1 – oxoguanine glycosylase; OH•–gốc hydroxyl; ONOO-–peroxynitrit; OPG – chất tạo xương; OXPHOS – phosphoryl hóa oxy hóa; PARP – polyme (ADP-ribose) polymerase; PKC – protein kinase C; RAGE – thụ thể cho AGEs; RAS – hệ thống renin-angiotensin; ROS/NS – các loại oxy và nitơ phản ứng; Smac – chất kích hoạt có nguồn gốc từ ty thể thứ hai của caspase; Smad2 – những bà mẹ chống lại chứng tương đồng decapentaplegic 2; SOD2 – superoxide dismutase 2; STZ – streptozotocin; TCA – axit tricacboxylic; TGF – yếu tố tăng trưởng biến đổi; TRAIL – phối tử gây chết tế bào chết liên quan đến yếu tố hoại tử khối u; VCAM-1 – phân tử kết dính tế bào mạch máu 1; ZDF – Zucker béo đái tháo đường
-
- Giới thiệu
Bệnh tiểu đường được công nhận là nguyên nhân hàng đầu của bệnh thận giai đoạn cuối (ESRD) ở các nước phát triển [1]. Số liệu thống kê cho thấy tỷ lệ mắc bệnh tiểu đường loại 2 trên toàn cầu đang gia tăng đều đặn, với dịch bệnh béo phì trên toàn thế giới được công nhận là một yếu tố nguy cơ chính [2]. Với ước tính 7,7% dân số thế giới trong độ tuổi từ 20-79 được dự đoán mắc bệnh tiểu đường vào năm 2030, các biến chứng mạch máu nhỏ như bệnh thận do tiểu đường dự kiến sẽ đóng góp một tỷ lệ đáng kể vào tỷ lệ mắc bệnh trên toàn thế giới [3]. Hơn nữa, bệnh thận mãn tính (CKD), ảnh hưởng đến khoảng 5-30% người mắc bệnh tiểu đường loại 2, là một yếu tố nguy cơ đáng kể cho sự phát triển bệnh tim mạch (CVD) [4, 5]. Bệnh nhân tiểu đường có albumin niệu vi lượng có nguy cơ bị suy tim mạch cao gấp 2-4 lần so với bệnh nhân không mắc bệnh tiểu đường [6]. Trong khi những bệnh nhân tiểu đường mắc bệnh thận rõ ràng có nguy cơ mắc bệnh tim mạch tăng gấp 4-8 lần [7]. Mặc dù đã sử dụng thuốc hạ đường huyết, lipid và huyết áp, nhưng gần một nửa số bệnh nhân tiểu đường vẫn tiếp tục phát triển các biến chứng về thận và tim mạch. Vì vậy, việc tìm kiếm các liệu pháp hiệu quả vẫn là mục tiêu chính trong điều trị bệnh tiểu đường.
Stress oxy hóa (các gốc tự do) và viêm, gây ra bởi sự gia tăng đường huyết mãn tính ở bệnh nhân tiểu đường, ngày càng được công nhận là yếu tố nguy cơ [8] và là tác nhân cơ chế quan trọng [9-11] có liên quan không thể tách rời với sự phát triển của các biến chứng tiểu đường bao gồm bệnh thận mạn CKD và cuối cùng là suy thận giai đoạn cuối ESRD. Có bằng chứng cho thấy các loại oxy và nitơ phản ứng (ROS/NS) – các gốc tự do đóng vai trò chính trong cơ chế bệnh sinh của bệnh thận do tiểu đường. Điều này đã khởi xướng những nỗ lực gia tăng để giảm thiểu hoặc ngăn chặn thiệt hại tích lũy của thương tích do ROS/NS các gốc tự do gây ra. Tuy nhiên, các thử nghiệm chống oxy hóa lâm sàng với tiêu chí chính là giảm bệnh thận mạn CVD đã cho thấy rất ít thành công, điều này nhấn mạnh nhu cầu cần có thêm kiến thức về các nguồn gốc sản xuất ROS/NS các gốc tự do và các quy trình chính mà chúng tham gia [12-14].
Sự quan tâm ngày càng tăng hiện đang được trả lời về tầm quan trọng của ROS / NS các gốc tự do trong ty thể được tạo ra để đáp ứng với mức glucose tăng cao với tư cách là nhân tố chính trong quá trình chết tế bào. Điều này không chỉ ảnh hưởng đến khả năng hoạt động tối ưu của một tế bào, mà cuối cùng và tổng thể, nó chỉ ra cách một cơ quan như thận của bệnh nhân tiểu đường phản ứng với môi trường glucose cao đầy thách thức của nó. Đánh giá này sẽ tập trung vào các bằng chứng mới nhất, cả lâm sàng và tiền lâm sàng, để đánh giá sự đóng góp của ROS/NS các gốc tự do đối với suy thận cấp ở bệnh tiểu đường. Các liệu pháp nhắm mục tiêu cụ thể ROS của ty thể để ngăn chặn sự chết của tế bào sẽ được thảo luận và các lựa chọn can thiệp mới hơn xung quanh mô hình này sẽ được trình bày.
-
- Đóng góp của việc sản xuất ROS/NS đối với bệnh thận đái tháo đường
Theo định nghĩa, stress oxy hóa là do sản xuất quá mức ROS/NS các gốc tự do và/hoặc thiếu khả năng bảo vệ chống oxy hóa bằng enzyme và phi enzyme. Do đó sự cân bằng nghiêng về phía tích lũy ROS/NS và tổn thương tế bào. Bằng chứng từ các nghiên cứu tiền lâm sàng ủng hộ vai trò của sự tham gia của ROS/NS các gốc tự do trong cơ chế bệnh sinh của bệnh thận mạn CKD và suy thận giai đoạn cuối ESRD do tiểu đường. Người ta đã chứng minh rằng ở mức độ cao các dấu hiệu tổn thương ROS/NS các gốc tự do tích tụ trong thận của bệnh nhân tiểu đường [15-18] và, trong điều kiện đường huyết tăng cao giống bệnh tiểu đường, trong các tế bào nuôi cấy có nguồn gốc từ thận khác nhau [19, 20]. Dữ liệu từ phòng thí nghiệm của chúng tôi đã chứng minh rõ ràng tình trạng , stress oxy hóa các gốc tự do gia tăng và bệnh thận tiến triển ở chuột mắc bệnh tiểu đường loại 1 thiếu enzyme chống oxy hóa tế bào và ty thể chính glutathione peroxidase 1 (GPx1) [21]. Đặc biệt, nghiên cứu của chúng tôi đã chứng minh mối liên hệ chặt chẽ giữa sự gia tăng stress oxy hóa các gốc tự do, tăng cường phản ứng viêm (protein hóa hướng động đơn nhân 1 (MCP-1), phân tử bám dính tế bào mạch máu 1 (VCAM-1)) và tăng các chất trung gian tiền xơ hóa (yếu tố tăng trưởng biến đổi (TGF) β, collagens I và III) trong vỏ thận của bệnh nhân tiểu đường. Thật vậy, ROS/NS các gốc tự do, peroxynitrite, đã được chứng minh là đóng một vai trò quan trọng trong cơ chế bệnh sinh của tổn thương cầu thận ở bệnh nhân tiểu đường [22]. Các nghiên cứu tiền lâm sàng khác với sự thay đổi di truyền của các enzyme sản xuất ROS/NS chính, NADPH-oxidase (NOX), đặc biệt là NOX4, hỗ trợ thêm cho lý thuyết về tổn thương thận do bệnh tiểu đường qua trung gian oxy hóa [23]. Cắt bỏ NOX4 trong mô hình chuột mắc bệnh tiểu đường loại 1 đã tạo ra sự bảo vệ rõ rệt khỏi tổn thương thận cả về cấu trúc và chức năng [9]. Do đó, nhắm mục tiêu NOX4 bằng các chất ức chế dược lý có thể đưa ra một chiến lược điều trị khả thi để giảm tổn thương thận do tiểu đường.
Trên lâm sàng, bệnh nhân thận do đường týp 2 biểu hiện sự gia tăng bài tiết 8-hydroxy-2′-deoxyguanosine (8-OHdG) qua nước tiểu, một dấu hiệu của tổn thương DNA do oxy hóa, có mối tương quan thuận với mức độ tổn thương ống kẽ thận ở những bệnh nhân này [24]. Hơn nữa, một dấu hiệu bổ sung về tổn thương DNA, 8-oxo-7,8-dihydro-2′-deoxyguanosine (8-oxodG), dự đoán mạnh mẽ sự tiến triển của bệnh ở bệnh nhân tiểu đường loại 2 trong thời gian theo dõi 5 năm [ 25].
Ở cấp độ phân tử, ROS/NS các gốc tự do, được tạo ra do nồng độ glucose tăng cao, ảnh hưởng đến các con đường truyền tín hiệu tế bào liên quan đến quá trình trao đổi chất, tăng sinh tế bào và chết tế bào [26]. Đặc biệt liên quan đến bệnh thận do tiểu đường, một số nghiên cứu đã chỉ ra sự liên quan của các gốc tự do ROS trong việc kích hoạt qua trung gian glucose của con đường protein kinase C (PKC) trong các tế bào trung mô, dẫn đến tăng nồng độ TGF-β [27, 28], một chất trung gian quan trọng của xơ hóa thận [29, 30]. Các gốc tự do ROS cũng đã được chứng minh là kích hoạt tín hiệu NF-κB trong các tế bào trung mô, gây ra phản ứng tiền viêm [31].
Bằng chứng từ các nghiên cứu chống oxy hóa đã hỗ trợ thêm cho vai trò điều biến tín hiệu tế bào qua trung gian ROS/NS. Thật vậy, các nghiên cứu của chúng tôi với chất chống oxy hóa và ebselen mô phỏng GPx1 đã cho thấy sự giảm kích hoạt p38 MAP kinase (MAPK) và JNK trong các tế bào thận chuột bình thường (NRK) [21], cho thấy sự tham gia của các gốc tự do ROS/NS trong các con đường liên kết này đến bệnh thận do tiểu đường. Những người khác đã sử dụng các chất chống oxy hóa khác nhau và nhận thấy sự giảm các gốc tự do ROS được kích thích bởi TGF-β và quá trình chuyển đổi trung mô-nội mô (EMT), cũng như mức độ thấp hơn của Smad2, p38 MAPK và kinase được điều hòa tín hiệu ngoại bào (ERK) trong ống thận. tế bào biểu mô [32]. Tóm lại, có đủ bằng chứng tiền lâm sàng ủng hộ vai trò của các gốc tự do ROS/NS được kích thích bằng glucose trong việc phá vỡ các tầng truyền tín hiệu liên quan và các yếu tố phiên mã liên quan đến chức năng và chuyển hóa của tế bào, dẫn đến sự giãn nở của trung mô cầu thận và xơ hóa ống kẽ thận.
-
- Các gốc tự do ROS/NS ty thể trong cơ chế bệnh sinh của bệnh thận đái tháo đường
Tầm quan trọng của ty thể nguyên vẹn, hoạt động hiệu quả là bắt buộc để ngăn ngừa tổn thương thận và suy thận [33, 34]. Ty thể tham gia vào nhiều quá trình sinh học, chẳng hạn như sản xuất năng lượng, cân bằng nội môi canxi và điều hòa quá trình chết tế bào, bao gồm chết theo chương trình, chết tế bào theo chương trình và hoại tử không được kiểm soát [35]. Ty thể đóng vai trò nghịch lý trong việc thúc đẩy cân bằng nội môi tế bào thông qua ATP được tạo ra bởi quá trình phosphoryl hóa oxy hóa (OXPHOS) và bắt đầu gây chết tế bào thông qua việc giải phóng các protein gây chết tế bào không gian liên màng, chẳng hạn như cytochrom c, Smac/DIABLO, yếu tố gây chết tế bào theo chương trình (AIF), và endonuclease G (EndoG). Những hoạt động này có thể được liên kết với sự mất cân bằng trong oxy hóa khử quy định trong ma trận ty thể, một hiệp hội đóng vai trò quan trọng trong bệnh thận do tiểu đường. Dòng bằng chứng này sẽ được thảo luận thêm trong các phần tiếp theo.
OXPHOS liên quan đến việc chuyển các electron qua các phức hợp I-IV của chuỗi vận chuyển điện tử (ETC) để tạo ra điện thế màng (Δψm) cần thiết để thiết lập động lực proton thúc đẩy quá trình sản xuất ATP. Mặc dù OXPHOS rất quan trọng để đáp ứng nhu cầu năng lượng của tất cả các tế bào nhân chuẩn, nhưng điều này thể hiện rõ nhất ở các tế bào ống lượn gần và ống lượn xa phụ thuộc vào ATP để điều khiển các chất đối kháng Na+/K+ và chất vận chuyển Ca2+, tương ứng [36-38]. Tuy nhiên, sản phẩm phụ của OXPHOS là sản xuất superoxide (O2•-) xảy ra do các electron thoát ra khỏi phức hợp I và III và phản ứng với oxy phân tử. Trong ty thể nguyên vẹn, phức hợp I và vị trí Q1 của phức hợp III giải phóng O2•- về phía ma trận ty thể, trong khi vị trí Q0 của phức hợp III giải phóng O2•- về phía không gian liên màng. [39, 40]. Sự suy yếu của phức hợp I có thể dẫn đến sự gia tăng hình thành các loài phản ứng và sự phát triển của tổn thương thận tương tự như đã thấy ở bệnh thận do tiểu đường, như đã được chứng minh ở chuột bị loại bỏ Ndufs6 [41]. Ngoài ra, O2•- có thể được chuyển đổi thành ROS/NS khác, chẳng hạn như hydro peroxide (H2O2) và các gốc hydroxyl (OH•), đồng thời có thể phản ứng với oxit nitric để tạo thành peroxynitrite (ONOO-) và nitơ điôxit (•NO2-) [33]. Đối với ống lượn gần, điều này được cho là trầm trọng hơn trong điều kiện tăng đường huyết, trong đó sự gia tăng tái hấp thu glucose có thể dẫn đến tăng đường phân và OXPHOS, dẫn đến tăng stress oxy hóa [34]. Ngoài ra, methylglyoxal, một sản phẩm phụ α-dicarbonyl của quá trình đường phân, có thể tạo ra sự hình thành các sản phẩm cuối glycation tiên tiến (AGEs) làm trầm trọng thêm quá trình sản xuất ROS [42].
AGEs tích lũy trong bệnh tiểu đường. Chúng có liên quan đến sự gia tăng stress oxy hóa thông qua tín hiệu thông qua thụ thể dành cho AGEs (RAGE) [33, 43]. Nhóm của chúng tôi đã chứng minh rằng ROS/NS tế bào do RAGE gây ra thúc đẩy sản xuất O2•- của ty thể thông qua kích hoạt phức hợp I của ETC ty thể, kích hoạt sự hình thành lỗ chuyển tiếp thấm qua ty thể (mPTP) và gây chết tế bào, có thể bị suy giảm ở bệnh tiểu đường RAGE-/ – chuột [44]. Sự hình thành AGEs thông qua tích lũy methylglyoxal dẫn đến việc biến đổi các tiểu đơn vị, protein lõi 1 và cytochrom c1, của phức hợp III gây ra sản xuất O2•-, như thể hiện ở vỏ thận của chuột mắc bệnh tiểu đường [45]. Sự biểu hiện quá mức của glyoxalase I, enzyme chịu trách nhiệm giải độc methylglyoxal, đã được chứng minh là làm giảm biểu hiện của phức hợp I, II và III, đồng thời làm giảm sản xuất ROS và quá trình chết theo chương trình trong điều kiện tăng đường huyết ở tế bào trung mô của chuột [46]. Tóm lại, bằng chứng hiện có ủng hộ vai trò quan trọng của các gốc tự do ROS/NS được sản xuất dưới dạng sản phẩm phụ của ETC trong bệnh thận do tiểu đường. Thật vậy, Brownlee và đồng nghiệp đã đề xuất giả thuyết thống nhất về các biến chứng tiểu đường trong đó các gốc tự do ROS/NS do ETC tạo ra gây ra các biến chứng tiểu đường [47-49]. Suy nghĩ hiện tại đã mở rộng dựa trên những ý tưởng này để suy đoán rằng các hoạt động của các gốc tự do ROS/NS do ETC tạo ra rất có thể liên quan đến các con đường bổ sung và các enzyme sản xuất các gốc tự do ROS/NS. Những khía cạnh này được thảo luận thêm dưới đây.
Quy định cân bằng nội môi oxi hóa khử trong môi trường bệnh nhân tiểu đường là chủ đề của hai nghiên cứu gần đây về bệnh thận do tiểu đường. Enzyme myo-inositol oxygenase (MIOX) đặc hiệu cho ống thận được xác định là chất điều chỉnh sự mất cân bằng oxy hóa khử trong ty thể trong điều kiện tăng đường huyết [50]. Những nghiên cứu này cho thấy sự gia tăng MIOX trong vỏ thận của ICR (Viện nghiên cứu ung thư) gây ra bệnh tiểu đường do streptozotocin (STZ) ở chuột đực. Hơn nữa, sự gia tăng các gốc tự do ROS và tỷ lệ chết theo chương trình liên quan đến tăng biểu hiện MIOX đã được quan sát thấy trong dòng tế bào ống lượn gần thận, LLC-PK1 [50]. Tương tự như vậy, enzyme oxi hóa khử p66Shc, định vị trong ty thể, có liên quan đến quy định sản xuất các gốc tự do ROS/NS và quá trình chết theo chương trình khi tiếp xúc với lượng glucose tăng lên trong bệnh thận do tiểu đường [51]. Enzyme này đã được chứng minh là bị ức chế về mặt di truyền bởi protease đông máu, protein C hoạt hóa (aPC), trong tế bào podocytes ở bệnh thận do tiểu đường [51].
Một trọng tâm quan trọng của nghiên cứu gần đây là về NADPH oxidase trong vỏ thận ở bệnh nhân tiểu đường, đặc biệt là NOX4, như đã thảo luận ở trên. Chúng tôi và cộng sự đã chứng minh rằng NOX4 được điều chỉnh tăng trong điều kiện tăng đường huyết trong khoang ty thể của tế bào [52]. NOX4 đã được định vị trong các phần màng vỏ thận [52]. Do các isoenzym NOX cư trú bên trong tế bào và màng tế bào [53], nên có khả năng là NOX4 xuyên qua màng trong của ty thể và O2•- hoặc H2O2 được giải phóng vào khoảng gian giữa các màng (IMS) của ty thể. Ban đầu, người ta cho rằng NOX4 chỉ tạo ra H2O2 [54], nhưng nó cũng có khả năng tạo ra O2•-, như Block et al. [52].
NOX4 cũng đã được định vị trong phần ty thể của các tế bào trung mô cầu thận được biết đến là mục tiêu chính cho tổn thương oxy hóa qua trung gian glucose [23]. Trong khi NADP+/NADPH có thể đi qua màng ngoài ty thể, nó không thấm vào màng trong. NOX4 yêu cầu NADPH hoạt động. Thực tế là chức năng tạo ra O2•-NOX4 đã được xác định trong các tế bào trung mô của bệnh nhân tiểu đường cho thấy rằng đầu carboxyl của NOX4 được định vị để tiếp xúc với không gian liên màng [52]. Hơn nữa, NOX4 có thể ảnh hưởng gián tiếp đến chu trình axit citric, nằm trong ma trận ty thể, thông qua ảnh hưởng của nó đối với quá trình chuyển hóa isocitrate. Điều này bao gồm việc chuyển đổi isocitrate thành α-ketoglutarate bởi isocitrate dehydrogenase 2 (IDH2), phụ thuộc vào NADP+ [55]. Gần đây, việc sử dụng các chất chuyển hóa đã tiết lộ rằng NOX4 đóng vai trò chính trong việc điều chỉnh fumarate chuyển hóa nước tiểu của axit tricarboxylic (TCA) ở chuột Akita mắc bệnh tiểu đường bằng cách tác động lên enzyme fumarate hydratase của ty thể. Điều quan trọng là, các biện pháp can thiệp bằng chất ức chế NOX1/NOX4 đã phục hồi mức độ hydratase và fumarate fumarate và giảm albumin niệu, phì đại cầu thận và tích tụ chất nền trung mô ở những con chuột mắc bệnh tiểu đường này [56]. Tuy nhiên, rõ ràng là O2•- do NOX4 trong ty thể tạo ra không thể có mối liên hệ trực tiếp với sự thiếu hụt trong ETC hoặc tính toàn vẹn của DNA ty thể (mtDNA) được đặt trong màng trong hoặc chất nền của ty thể tương ứng, trừ khi được chuyển đổi thành các phân tử thấm qua màng chẳng hạn như H2O2 hoặc ONOO-, mà chúng tôi đã chứng minh là tăng lên ở bệnh nhân thận do tiểu đường [57].
Nếu NOX4 có bất kỳ ảnh hưởng xấu nào trong ty thể thì nó có khả năng xảy ra trong IMS. Cũng có khả năng glutathione reductase cạnh tranh với NOX4 để giành NADPH nhằm duy trì sự cân bằng của glutathione được sử dụng cho Gpx1 và Gpx4 trong ty thể để giải độc H2O2 bằng cách chuyển đổi thành H2O. Thật vậy, chất ức chế NOX apocynin đã được chứng minh là có thể khôi phục tỷ lệ glutathione/glutathione disulfide (GSH/GSSG) ở chuột Zucker bị béo phì do tiểu đường (ZDF) [58]. Trong IMS, O2•- do NOX4 tạo ra phải được giải độc bởi SOD1. Mặt khác, nó gây tổn hại cho màng trong và ngoài của ty thể [59]. Đây sẽ là vấn đề của nghiên cứu trong tương lai để làm rõ liệu quá trình tái cấu trúc NOX4 do bệnh tiểu đường gây ra có đủ để phá vỡ màng ngoài, bắt đầu mPTP hoặc tạo ra sự hoán vị màng ngoài ty thể (MOMP) hay không, và do đó kích hoạt sự phân phối lại các protein chết của tế bào IMS. Thật vậy, người ta đã chứng minh rằng quá trình tái điều hòa NOX4 làm trung gian quá trình chết theo chương trình do TGF-β gây ra trong các tế bào podocytes, mặc dù người ta chưa điều tra xem liệu các protein chết của tế bào IMS có tham gia vào quá trình này hay không [60].
Các cuộc điều tra cũng tập trung vào sự thiếu hụt trong mạng lưới chống oxy hóa trong ty thể, bao gồm coenzym Q, SOD2 và GPx4 [34]. Hậu quả của sự mất cân bằng trong các chất tạo ROS và chất chống oxy hóa này trong vỏ thận của bệnh nhân tiểu đường là sự gia tăng các gốc tự do stress oxy hóa trong ty thể, có thể kích hoạt dòng thác chết tế bào nội tại [61]. Hình11 tóm tắt những nhân tố chính tham gia vào quá trình truyền tín hiệu oxi hóa khử trong ty thể. Trong điều kiện bệnh tiểu đường, tín hiệu oxy hóa khử này bị gián đoạn, dẫn đến tăng stress oxy hóa.
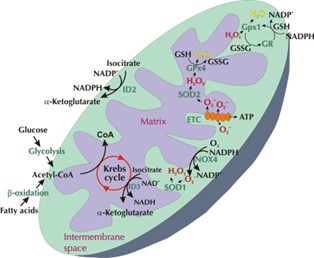
Hình 1: Tín hiệu oxi hóa khử trong ty thể
ROS ở dạng superoxide (O2.-) có thể được tạo ra thông qua chuỗi vận chuyển điện tử (ETC) hoặc NOX4 bên trong màng trong ty thể (IMM). O2.- được giải phóng từ các phức hợp I và III của ETC vào chất nền hoặc không gian liên màng. O2.- được giải phóng từ NOX4 hoặc phức hợp III đi vào không gian liên màng nơi nó bị SOD1 phân hủy thành hydro peroxide (H2O2). O2.- trong ma trận được SOD2 chuyển thành H2O2. Ngược lại, H2O2 được giải độc thành H2O thông qua GPx1 trong không gian liên màng hoặc thông qua GPx4 trong ma trận. Sự cân bằng tinh tế này của ROS trong ty thể phụ thuộc vào chu trình Krebs (axit citric), quá trình chuyển đổi NAD(P)+ thành NAD(P)H và ngược lại. Trong điều kiện bệnh tiểu đường, tín hiệu oxy hóa khử này bị gián đoạn, dẫn đến tăng các gốc tự do stress oxy hóa.
Cuối cùng, cần đề cập rằng kết quả từ các nghiên cứu về sự xuất hiện của các gốc tự do ROS/NS ty thể trong bệnh tiểu đường và số lượng được tạo ra không nhất quán ở một mức độ nào đó. Mặc dù hiện nay người ta thường chấp nhận rằng các gốc tự do ROS/NS có nguồn gốc từ ty thể tăng lên trong bệnh tiểu đường, nhưng một số nghiên cứu đã báo cáo mức giảm tổng thể [62, 63]. Sự khác biệt có thể là do tính không đồng nhất của tế bào và các phản ứng trao đổi chất khác nhau của các tế bào trong thận [64]. Nghiên cứu thêm là cần thiết để làm rõ vấn đề này.
-
- Hậu quả của các gốc tự do stress oxy hóa ở thận do tiểu đường
4.1 Tổn thương DNA hạt nhân
Stress oxy hóa các gốc tự do được biết là góp phần gây ra một loạt các sự kiện nội bào có hại, bao gồm cả tổn thương DNA trong nhân. Thiệt hại này cuối cùng có thể gây ra rối loạn chức năng, chết tế bào và nguy cơ phát sinh ung thư lâu dài. Nói chung, tổn thương DNA oxy hóa, ở dạng bazơ bị oxy hóa, xảy ra thường xuyên tới một triệu lần mỗi ngày trong cơ thể con người do hậu quả của quá trình trao đổi chất bình thường và các yếu tố môi trường khác [65, 66]. Các tế bào dựa vào cơ chế sửa chữa DNA năng lượng cao để loại bỏ tổn thương DNA. Điều này bao gồm việc tuyển dụng phức hợp protein sửa chữa cắt bỏ cơ sở (BER), trong số những thứ khác, để sửa chữa loại thiệt hại này [67]. Sự hình thành các phức hợp sửa chữa DNA nói chung (ví dụ: mất điều hòa giãn mạch bị đột biến (ATM), mất điều hòa và kinase liên quan đến rad (ATR)) liên quan đến việc kích hoạt các protein nhắm mục tiêu biểu hiện gen và sản xuất protein để phản ứng nhanh với tổn thương được phát hiện. Hai trong số các yếu tố phiên mã quan trọng hơn là p53 và NF-κB, cả hai đều điều chỉnh biểu hiện gen.
Trong trường hợp mức độ thiệt hại DNA cao, việc tuyển dụng một lượng lớn phức hợp sửa chữa có thể dẫn đến sự cạn kiệt nhanh chóng ATP có sẵn do nhu cầu năng lượng tăng cao, ví dụ: bằng cách phân cắt protein poly (ADP-ribose) polymerase (PARP) cảm nhận tổn thương [68, 69]. Điều này tạo ra khả năng chết tế bào không được kiểm soát (tức là hoại tử) vì không có đủ năng lượng để các tế bào trải qua quá trình chết tế bào được lập trình phụ thuộc vào ATP (apoptosis) [70]. “Công tắc” này trong quá trình kích hoạt PARP-1 của tế bào chết liên quan đến tổn thương DNA đã được quan sát thấy trong các tế bào thận của chó [71, 72]. Tuy nhiên, nếu tổn thương DNA do ROS gây chết người ở dưới mức gây chết người, các tế bào có thể sửa chữa đầy đủ tổn thương và thậm chí thích nghi với sự thay đổi mãn tính [73].
Ty thể có liên quan đến việc cảm nhận tổn thương DNA hạt nhân. Chúng có thể ảnh hưởng đến phản ứng của tế bào, bao gồm giải phóng yếu tố gây chết tế bào theo chương trình (AIF), một loại protein liên quan đến sự phân mảnh DNA và ngưng tụ chất nhiễm sắc trong quá trình chết theo chương trình [74]. Trong cơ chế bệnh sinh của bệnh thận do tiểu đường, tổn thương ty thể liên quan đến các gốc tự do stress oxy hóa góp phần gây ra quá trình tự chết theo chương trình và mất tế bào podocytes, đây là những sự kiện quan trọng trong quá trình tiến triển của bệnh [75].
Khả năng các tế bào thích ứng với mức các gốc tự do ROS/NS tăng lên là một thành phần quan trọng trong việc bảo vệ cân bằng nội môi. Do tần suất tổn thương DNA oxy hóa trên toàn cơ thể, các tế bào có cơ chế mạnh mẽ để xác định và sửa chữa thiệt hại này nhằm ngăn ngừa độc tính di truyền hoặc đột biến tích lũy. BER là một trong những cơ chế được các tế bào động vật có vú sử dụng để sửa chữa tổn thương DNA do quá trình oxy hóa gây ra. [76, 77]. Trong các tế bào bình thường, con đường BER được điều chỉnh bởi 3 protein chính: OGG1, MTH1 và MUTYH tạo thành một phần của tổ hợp sửa chữa BER [78, 79]. Khi một bazơ deoxyguanosine bị oxy hóa (8-oxo-dG) được sửa chữa bởi BER, bazơ bị phân hủy (8-OHdG) sẽ được thải ra khỏi tế bào và được lọc qua thận [80].
Các đánh giá gần đây về sự phá vỡ DNA gây ra bởi stress oxy hóa cho thấy chúng tăng lên ở những bệnh nhân mắc bệnh tiểu đường loại 1 và loại 2, mặc dù hầu hết các nghiên cứu liên quan đến phân tích tế bào lympho ngoại vi [81-83]. Hiện tượng tương tự cũng xảy ra ở bệnh tiểu đường thai kỳ [84, 85]. Đặc biệt quan tâm là sự liên quan với biến chứng thận. Tác động trực tiếp của lượng đường trong máu cao đối với việc sản xuất các gốc tự do ROS/NS và tổn thương DNA sau đó đã được đánh giá trong mô hình chuột mắc bệnh tiểu đường loại 1 [86]. Những nghiên cứu này ủng hộ giả thuyết rằng tổn thương do stress oxy hóa xảy ra ở thận của bệnh nhân tiểu đường. Nghiên cứu lâm sàng về tác động của tổn thương DNA do stress oxy hóa gây ra đối với tế bào thận còn hạn chế, một phần là do nhu cầu sinh thiết thận. Tuy nhiên, có thể xác định gián tiếp mức độ tổn thương oxy hóa ở bệnh nhân bằng cách phân tích sự bài tiết nước tiểu của các base DNA bị oxy hóa ở dạng 8-OHdG. Phương pháp được kiểm chứng này đã cho thấy tỷ lệ bài tiết tăng lên ở bệnh nhân tiểu đường, tương ứng với sự gia tăng tổn thương DNA do các gốc tự do stress oxy hóa tổng quát gây ra trên khắp cơ thể [80].
Điều thú vị là, sự xuất hiện của tổn thương cơ sở 8-oxo-dG đã được tìm thấy trùng khớp với các biến chứng tiểu đường và có thể là một dấu ấn sinh học dự đoán để phát hiện mức độ nghiêm trọng của các biến chứng tiểu đường, bao gồm bệnh võng mạc và bệnh thận [80, 87, 88]. Mặc dù tỷ lệ bài tiết cao hơn có tương quan với mức độ nghiêm trọng của bệnh thận do tiểu đường, dấu ấn sinh học quan trọng này chỉ có thể đưa ra ý tưởng về tổn thương DNA toàn thân (tức là tổn thương tương đối trong toàn bộ cơ thể), chứ không phải tỷ lệ mắc cụ thể ở một cơ quan riêng lẻ. Một yếu tố hạn chế khác đối với việc sử dụng 8-OHdG làm dấu ấn sinh học cho tổn thương thận là sự bài tiết 8-OHdG bị ảnh hưởng bởi các yếu tố tổng hợp khác, bao gồm cả tập thể dục và độc tố từ môi trường [89-91]. Điều này hạn chế ý nghĩa lâm sàng của những nghiên cứu này vì tốc độ bài tiết cơ bản của một cá nhân có thể thay đổi đáng kể.
4.2 Tổn thương DNA ty thể
Ngoài tác động gây tổn thương DNA nhân, mtDNA ở bệnh nhân thận do tiểu đường còn bị tổn thương bởi các gốc tự do ROS/NS [18]. Sự gần gũi của mtDNA với ETC trong ma trận ty thể khiến loại DNA này rất dễ bị tổn thương bởi các gốc tự do ROS/NS được tạo ra trong quá trình OXPHOS. Cơ chế này thường được coi là giải thích cho việc quan sát mtDNA bị oxy hóa tăng lên so với tổn thương DNA hạt nhân [92]. Mặc dù tổn thương mtDNA cuối cùng sẽ được sửa chữa sau một thời gian ngắn, nhưng những tổn thương kéo dài hơn sẽ dẫn đến tổn thương dai dẳng mà sau đó có thể dẫn đến quá trình chết theo chương trình [93]. Thiệt hại MtDNA cũng được sửa chữa thông qua con đường BER bằng cách cắt bỏ 8-OHdG, mặc dù dường như có một số khác biệt nhỏ giữa các protein được tuyển dụng trong mỗi bào quan. Ví dụ, DNA nucleic được sửa chữa chủ yếu bởi DNA ligase I, trong khi tổn thương mtDNA được sửa chữa bởi DNA ligase III [94].
Vai trò của các gốc tự do stress oxy hóa trong tổn thương DNA và rối loạn chức năng ty lạp thể đã được thiết lập trong các bệnh lý khác như thoái hóa thần kinh, suy tim và bệnh võng mạc tiểu đường [95-97]. Trong một nghiên cứu lâm sàng gần đây, người ta đã tìm thấy mối liên hệ giữa bệnh tiểu đường, mtDNA bị hỏng và mtDNA bị thay đổi chức năng. Thật vậy, những thay đổi trong mtDNA xảy ra trước rối loạn chức năng năng lượng sinh học, khiến các tác giả đề xuất rằng rối loạn chức năng ty lạp thể có hệ thống do tổn thương mtDNA do glucose gây ra có thể liên quan đến sự phát triển của bệnh thận do tiểu đường [98].
4.3 Cơ chế sửa chữa DNA bị tổn hại
Tính nhạy cảm với tổn thương DNA do các gốc tự do stress oxy hóa đã được chứng minh là có tương quan với một số tính đa hình gen nhất định trong con đường BER trong các biến chứng của bệnh tiểu đường loại 2 như bệnh đa dây thần kinh đối xứng xa [99, 100]. Một nghiên cứu đã kiểm tra những thay đổi trong biểu hiện gen của protein phức hợp BER MUTYH, một loại protein quan trọng trong phản ứng với stress tế bào, sau khi điều trị bằng TGF-β1. Các nhà điều tra phát hiện ra rằng biểu hiện của protein trong tế bào ống lượn gần khác với biểu hiện trong tế bào kẽ [101]. Hơn nữa, tổn thương DNA oxy hóa, được đo bằng 8-oxoG, có liên quan tích cực đến xơ hóa thận, cho thấy MUTYH làm trung gian tổn thương ống kẽ thận [101]. Các nghiên cứu khác đã chỉ ra rằng ức chế MUTYH thực sự có thể bảo vệ bệnh thận [102, 103]. Điều quan trọng là, tính đa hình được tìm thấy trong các gen của con đường sửa chữa DNA này cũng đã được chứng minh là làm tăng nguy cơ tiến triển suy thận giai đoạn cuối ESRD trong một nhóm bệnh nhân chạy thận nhân tạo do nhiều nguyên nhân khác nhau [102]. Sẽ rất thú vị khi kiểm tra hiệu ứng này trong bối cảnh bệnh thận do tiểu đường và trước đó trong quá trình tiến triển của bệnh, để xác định xem điều này có tương quan với nguy cơ tiến triển thành suy thận giai đoạn cuối (ESRD) của bệnh nhân hay không.
Bên cạnh BER, các lộ trình sửa chữa bổ sung như tái tổ hợp tương đồng và sửa chữa không khớp đáp ứng với tổn thương DNA nghiêm trọng [104]. Khi quá trình sửa chữa DNA không được tiến hành đầy đủ, sẽ có nguy cơ chết tế bào do hoại tử do yêu cầu năng lượng cao của quá trình sửa chữa DNA [70]. Do đó, các protein sửa chữa DNA có thể bị bất hoạt nếu có thể để điều chỉnh giảm hoạt động chức năng của chúng nhằm cứu vãn các con đường apoptotic [104]. Tuy nhiên, việc mất đi các quá trình sửa chữa quan trọng, cho dù là do các gốc tự do stress oxy hóa hoặc do các yếu tố khác, được cho là làm tổn hại đến tính toàn vẹn của DNA ty thể và nhân. Cần điều tra thêm để tìm hiểu làm thế nào các cơ chế sửa chữa bị tổn hại trong bệnh thận do tiểu đường.
-
- Các hình thức chết tế bào trong bệnh thận do tiểu đường
Tế bào chết là hậu quả tự nhiên của các gốc tự do stress oxy hóa khi tổn thương vượt quá khả năng đáp ứng và sửa chữa tổn thương của tế bào. Hai loại chết tế bào chính được quan sát thấy ở bệnh thận do tiểu đường là chết theo chương trình và hoại tử. Apoptosis là một quá trình được kiểm soát phụ thuộc nhiều vào việc tiếp tục sản xuất ATP để cung cấp năng lượng cho quá trình năng lượng cao này [69]; nó được đặc trưng bởi sự co lại của tế bào, ngưng tụ chất nhiễm sắc và sự phân mảnh DNA [61]. Apoptosis xảy ra thông qua hai loại con đường. Một là con đường thụ thể tử vong (con đường apoptotic bên ngoài) bao gồm phối tử FAS/FAS; thứ hai là con đường ty thể (con đường apoptotic nội tại) đòi hỏi các protein điều hòa như chúng liên quan đến Bcl2 [105]. Hoại tử, bằng cách so sánh, được coi là không kiểm soát được và thảm khốc. Trong cái chết của tế bào hoại tử, việc sản xuất ATP không đủ để đáp ứng nhu cầu năng lượng của tế bào, dẫn đến sự phá vỡ các chất bên trong tế bào [106]. Điều này tạo ra phản ứng viêm mức độ cao, không được quan sát thấy trong quá trình chết theo chương trình. Mỗi loại tế bào chết đều có hậu quả sinh lý tương ứng với biểu hiện lâm sàng của bệnh. Cuối cùng, stress ER [107] và lão hóa tế bào trong các loại tế bào chính của thận [108] là hai cơ chế bổ sung hiện được coi là góp phần vào quá trình chết tế bào trong bệnh thận do tiểu đường.
5.1 Cảm ứng quá trình chết theo chương trình
Trong bệnh thận do tiểu đường, các tổn thương gây bệnh được đặc trưng bởi sự phì đại ban đầu, sau đó là sự mất dần khối lượng thận, xơ cứng và xơ hóa. Apoptosis được biết là góp phần vào quá trình sau này ở cả người và động vật [109-111]; nó bao gồm việc điều chỉnh lại các dấu hiệu bề mặt tế bào khuyến khích quá trình thực bào (loại bỏ) bởi các tế bào miễn dịch lưu hành và cư trú. Các chất đánh dấu bề mặt này bao gồm CD36, CD95 (FAS-ligand), CD74 (MIF-R), OPG và TRAIL, được tăng lên ở bệnh nhân thận do tiểu đường [112-115]. FAS-phối tử liên kết với FAS. Người ta đã chứng minh rằng nồng độ FAS trong huyết tương tăng cao trong bệnh tiểu đường và tỷ lệ chết theo chương trình bắt đầu sớm trong quá trình phát triển protein niệu ở tế bào thận [116, 117]. Một nghiên cứu trên chuột cái mắc bệnh tiểu đường đã phát hiện ra rằng sự gia tăng FAS/FAS-ligand có thể bị suy giảm do phong tỏa hệ thống renin-angiotensin (RAS) [118]. Phần màng tế bào bên trong của phối tử FAS bao gồm protein liên kết với FAS có miền chết (FADD). Người ta đã chứng minh rằng FADD và đối tác dimeric của nó FADD-DD đóng một vai trò quan trọng trong việc làm trung gian cho quá trình chết tế bào ở các tế bào ống thận trong bối cảnh tổn thương thận cấp tính và chúng có thể làm trung gian cho tổn thương thận sớm do tiểu đường [119, 120]. Tuy nhiên, rõ ràng là các con đường bổ sung có liên quan do mức phối tử FAS tăng lên không tương quan trực tiếp với quá trình chết theo chương trình [116, 117].
Một sự kiện khác có thể xảy ra trong bệnh thận do tiểu đường bao gồm những thay đổi trong các protein tiền chết theo chương trình bên trong như BASP1, protein họ Bcl-2 và p53 [109]. Họ protein Bcl-2 được bảo tồn cao trong bệnh thận do tiểu đường và có liên quan đến việc điều chỉnh cả tín hiệu pro-survival và pro-apoptotic. Nhiều thành viên trong gia đình tương tác với nhau ở hạ nguồn của p53 và NF-κB để điều chỉnh sự sống của tế bào. Protein chống apoptotic Bcl-2 đã được chứng minh là đóng một vai trò quan trọng trong bệnh thận do tiểu đường [121] vì nó đối kháng với các protein Bax và Bak prooptotic cùng nhau kiểm soát sự chết của tế bào ty thể. Sự gia tăng Bax prooptotic so với Bcl-2 chống apoptotic thiết lập một kiểu hình prooptotic hơn; tỷ lệ này là một kỹ thuật thường được sử dụng để thiết lập tính nhạy cảm của các tế bào đối với sự chết tế bào apoptotic. Sự thay đổi về tỷ lệ này đã được chứng minh trên mô hình chuột mắc bệnh thận do tiểu đường týp 2 [122]. Sự gia tăng tỷ lệ Bax/Bcl-2 tiền chết theo chương trình quan sát được có thể được đảo ngược thông qua việc phong tỏa con đường RAS ở chuột biểu hiện quá mức angiotensinogen trong tế bào ống lượn gần [123].
Trong bệnh thận do tiểu đường ở người, dữ liệu bị hạn chế về những thay đổi trong biểu hiện Bcl-2 và Bax. Tuy nhiên, nó đã được xác định là một yếu tố góp phần gây ra các dạng bệnh thận khác [124, 125]. Ngoài ra, các thành viên khác trong gia đình Bcl-2 cũng có thể liên quan đến bệnh thận do tiểu đường. Ví dụ, sự biểu hiện quá mức của yếu tố biến đổi Bcl-2 (BMF) có liên quan đến quá trình chết theo chương trình trong cả nghiên cứu trên động vật và con người [126]. BMF là protein duy nhất BH3 (một phân lớp gồm các protein nhỏ hơn trong họ Bcl-2) gián tiếp kích hoạt Bax và Bak bằng cách ức chế các protein liên quan Bid, Noxa và Bik để thúc đẩy quá trình chết tế bào [127]. Các con đường khác liên quan đến bệnh thận do tiểu đường bao gồm Akt và p38 MAPK [128].
Ở bệnh nhân thận do tiểu đường, người ta thường cho rằng quá trình chết theo chương trình do các gốc tự do ROS/NS gây ra có liên quan đến những thay đổi cụ thể được quan sát thấy trong bệnh, đặc biệt là những thay đổi ở ống kẽ thận [129]. Ví dụ, thiệt hại do các gốc tự do ROS/NS gây ra do glucose cao có liên quan đến PKCdelta điều chỉnh protein phản ứng tế bào p66Shc [130]. P66Sch làm trung gian cho phản ứng glucose cao và ANG II đối với stress oxy hóa và tổn thương tế bào ống lượn gần (PTC) thông qua rối loạn chức năng ty lạp thể và con đường chết theo chương trình [131]. Một đánh giá gần đây về quá trình chết theo chương trình của ống thận ở bệnh thận do tiểu đường đã báo cáo rằng lượng đường trong máu cao là một trong những nguyên nhân chính gây ra sự chết tế bào do gốc tự do và ROS gây ra trong các tế bào này [61]. Các yếu tố gây stress khác liên quan đến tổn thương PTC bao gồm vận chuyển axit uric cũng liên quan đến tổn thương do các gốc tự do stress oxy hóa và quá trình chết theo chương trình [132].
Stress oxy hóa các gốc tự do kéo dài được biết là gây ra những thay đổi thích nghi trong tế bào. Các tế bào không thể thích ứng với những thay đổi sẽ chết theo một trong nhiều con đường chết tế bào có sẵn để phát hiện và phản ứng với các tình trạng stress tế bào có hại. Một con đường mà các gốc tự do ROS/NS góp phần gây chết tế bào là chuỗi apoptotic cổ điển liên kết với các protein thuộc họ Bcl-2 [133]. Con đường này bao gồm việc kích hoạt protein Bax di chuyển đến ty thể của các tế bào bị tổn thương và tạo ra những thay đổi về tính thấm của màng ngoài ty thể (MOMP) bằng cách hình thành lỗ màng ngoài ty thể. Các hiệu ứng xuôi dòng bao gồm việc giải phóng cytochrom c và sự phân tách caspase-3 sau đó.
Bax được kích hoạt bởi một loạt các tương tác protein tạm thời do tổn thương các gốc tự do ROS/NS khởi xướng. Tuy nhiên, trong mô hình silico cũng đề xuất kích hoạt trực tiếp Bax thông qua các tương tác oxy hóa [134]. Bax được biết đến như là một phần của con đường chết theo chương trình (nội tại) của ty thể, mặc dù toàn bộ các tương tác tế bào của nó vẫn chưa được hiểu rõ. Nó có một vai trò rõ ràng trong quá trình chết theo chương trình do p53 kích hoạt, nhưng bằng chứng cho thấy sự tham gia của Bax trong các dạng chết tế bào khác [135, 136]. Khi chết theo chương trình, Bax trải qua một sự thay đổi về hình dạng sau khi kích hoạt, cho phép nó liên kết với màng ty thể và tham gia vào quá trình hình thành MOMP. Ngoài Bax, protein liên quan Bak cũng có khả năng hình thành các lỗ chân lông này. Bak là một protein liên kết màng, trong khi Bax là tế bào chất ở trạng thái không hoạt động. Các nghiên cứu cho thấy Bax và Bak có thể oligome hóa trong quá trình hình thành MOMP [137]. Mặc dù hình thái chính xác của lỗ chân lông này vẫn còn là một vấn đề gây tranh cãi, nhưng có giả thuyết cho rằng có hai loại lỗ chân lông riêng biệt [138]. Biểu hiện Bax đã được tìm thấy tăng lên trong mô hình chuột STZ mắc bệnh tiểu đường và ở chuột dbdb [122, 139]. Tuy nhiên, biểu hiện trong các tế bào thận của con người chưa được khám phá tương đối trong bệnh thận do tiểu đường.
Mặc dù sự chết tế bào hoại tử cũng đã được quan sát thấy ở bệnh thận do tiểu đường [140], nhưng ý nghĩa đầy đủ về sự đóng góp của nó đối với căn bệnh này vẫn chưa được hiểu rõ.
5.2 Stress lưới nội chất
Chức năng của ty thể được liên kết chặt chẽ với chức năng của mạng lưới nội chất (ER). Stress ER là một khía cạnh quan trọng khác của bệnh lý tế bào. Nó xảy ra đồng thời với các gốc tự do stress oxy hóa trong bối cảnh bệnh tiểu đường và sự tiến triển của các biến chứng tiểu đường [107, 141, 142]. Trong điều kiện bình thường, ER chịu trách nhiệm điều chỉnh quá trình khẩn cấp với protein. Trong các tình huống có nhu cầu cao hoặc tổn thương protein (như đã thấy trong stress oxy hóa), phản ứng protein mở ra (UPR) được kích hoạt để khôi phục cân bằng nội môi ER. Điều này được trung gian bởi các protein XBP1 và IRE1, và cho phép bảo vệ tạm thời chống lại thiệt hại [143, 144]. Khi phản ứng protein mở ra bị quá tải, stress ER xảy ra. Đây là một quá trình gây độc tế bào liên quan đến rối loạn chức năng tế bào và kích hoạt các yếu tố proapoptotic như IRE1 [144].
Các tế bào có tỷ lệ sản xuất protein cao có nguy cơ rối loạn chức năng tế bào do stress ER. Các tế bào beta tuyến tụy là một ví dụ quan trọng do liên tục sản xuất tiền insulin. Ở bệnh tiểu đường loại 2, điều này đặc biệt có liên quan vì sự phát triển của tình trạng kháng insulin và sản xuất insulin tối đa khiến các tế bào tuyến tụy có nguy cơ bị stress ER [145, 146]. Ngoài ra, protein niệu và tăng đường huyết có thể trực tiếp gây ra stress ER ở PTC thận trong ống nghiệm [147]. Trên thực tế, sự điều chỉnh lại của các gen liên quan đến UPR có liên quan tích cực với mức độ nghiêm trọng của bệnh thận do tiểu đường tăng lên, được coi là một thay đổi bảo vệ [147]. Stress ER đã được chứng minh là trung gian bệnh lý thận trong bệnh thận do tiểu đường và tương ứng với mức độ nghiêm trọng của bệnh [148, 149]. Các ví dụ bao gồm albumin niệu, đã được chứng minh là gây ra stress ER bằng cách tạo ra biểu hiện caspase-12 [150]. Hơn nữa, sự tích lũy protein trong ống lượn gần được biết là xảy ra sau khi sử dụng aldosterone trong mô hình chuột (tương đương mức tăng sinh lý) và dẫn đến tổn thương PTC nếu không được loại bỏ bằng quá trình autophagy [151].
ER chịu trách nhiệm chính trong việc điều hòa Ca2+. Stress oxy hóa các gốc tự do đã được phát hiện là làm thay đổi cân bằng nội môi Ca2+ [152]. Sự thay đổi này bao gồm việc giải phóng Ca2+ từ ER vào tế bào chất, từ đó ảnh hưởng đến ty thể và chức năng của ty thể [153]. Trên thực tế, rò rỉ canxi đã được chứng minh là nguyên nhân trực tiếp gây ra sự gia tăng sản xuất các gốc tự do ROS/NS trong ty thể thông qua tương tác với OXPHOS [154]. Các protein khác có liên quan đến việc giảm sản xuất các gốc tự do ROS/NS tăng cao thông qua cơ chế phosphoryl hóa oxy hóa trong bệnh tiểu đường [155]. Tuy nhiên, hầu hết các nghiên cứu này tập trung vào các mô hình thoái hóa thần kinh hoặc cơ xương, không phải bệnh thận do tiểu đường.
Trong nhiều quá trình bệnh, tế bào chết do stress ER xảy ra thông qua con đường chết theo chương trình của ty thể [156]. Ở bệnh tiểu đường loại 2, stress ER dường như được điều chỉnh tăng và liên quan đến sự gia tăng cả quá trình chết theo chương trình và hoại tử tương quan với những thay đổi trong biểu hiện cytokine gây viêm [140]. Sự chuyển vị của Bax và Bak sang màng ER có thể xảy ra trong quá trình chết theo chương trình qua trung gian stress ER [157]. Hơn nữa, sự phân cắt caspase-12 xảy ra ở hạ nguồn, cho thấy con đường chết tế bào có khả năng độc lập với ty thể trong các tế bào nguyên bào sợi của con người [158]. Để so sánh, sự tái điều hòa và tích lũy của một loại protein họ Bcl-2 tiền apoptotic khác, BIM, tại màng ER có liên quan đến con đường chết của ty thể sau khi kích hoạt caspase-12 [159, 160].
Quá trình oligome hóa Bax/Bak tại màng ER, sau đó là hoạt hóa caspase-12 cũng đã được chứng minh trên mô hình chuột [161]. Tuy nhiên, caspase-12 của chuột là một dạng tương đồng của caspase-4 của con người. Biến thể này cũng có liên quan đến sự chết tế bào sau stress ER [162]. Ngoài ra, caspase-4 đã được quan sát là làm trung gian tử vong do PTC ở một số loại bệnh thận [163], nhưng vẫn chưa được xác nhận trong bệnh thận do tiểu đường. Mặc dù caspase-12 ở người đã được phân tích trong nhiều nghiên cứu, nhưng sự liên quan của nó đối với dân số nói chung đã bị nghi ngờ vì sự tương đồng đầy đủ của gen chỉ được biểu hiện ở người là 2,8% [164].
Các caspase bổ sung có thể được kích hoạt ở hạ lưu ứng suất ER, bao gồm caspase-7 [158] và caspase-8 [165, 166]. Có vẻ như sự phân bố của Bax đến các bào quan khác nhau liên quan đến loại tế bào chết gây ra [167]. Cấu trúc của lỗ màng ER được báo cáo vẫn chưa được biết, nhưng kết quả ban đầu chỉ ra những thay đổi về tính thấm của màng [157].
Autophagy là một con đường chết tế bào khác đã được quan sát thấy khi các thành phần chính của con đường apoptotic ty thể (tức là Bax/Bak, caspase-9) bị gián đoạn [165]. Mặc dù khía cạnh này có tầm quan trọng trong lĩnh vực nghiên cứu ung thư và kháng thuốc, nhưng trong bối cảnh bệnh thận do tiểu đường. Thật thú vị khi xem xét tác động của chức năng ty thể bị thay đổi trong con đường này. Đặc biệt là liên kết giữa ty thể và ER chuyển tiếp tín hiệu quan trọng trong quá trình chết tế bào [153]. Hơn nữa, các protein thuộc họ Bcl-2, Bax và Bak, cũng đã được liên kết với sự tương tác này bằng cách điều chỉnh cân bằng nội môi Ca2+ ER và dòng chảy vào bào tương [168]. Các protein gia đình Bcl-2 đóng vai trò chính trong việc làm trung gian phản ứng của ER và ty thể đối với tổn thương oxy hóa. Vai trò của Bax trong quá trình tiến triển từ stress ER sang chết theo chương trình là một lĩnh vực thú vị để khám phá bệnh thận do tiểu đường, xem xét vai trò của Bax trong con đường chết tế bào phụ thuộc vào ty thể. Hóa giải stress ER có khả năng cung cấp một mục tiêu điều trị để ngăn ngừa bệnh thận.
5.3 Lão hóa tế bào
Một kết quả tiềm năng khác của stress oxy hóa là sự lão hóa của tế bào. Điều này có thể là do một loạt các yếu tố, bao gồm cả phản ứng ức chế tăng trưởng vốn có đối với các kích thích gây đột biến DNA. Seneshood là một trạng thái hữu ích được tạo ra bởi các tế bào để bảo vệ khỏi sự đột biến mà không làm suy giảm khối lượng tế bào do quá trình tự hủy. Các tế bào có thể tồn tại vô thời hạn trong quá trình lưu giữ chu kỳ tế bào. Điều này tạo thành một chức năng sinh lý quan trọng trong các mô biệt hóa cuối cùng như tế bào thần kinh và tế bào gốc trưởng thành, giúp duy trì khả năng thoát khỏi sự lưu giữ chu kỳ tế bào.
Sự lão hóa của các tế bào có thể được kích hoạt bởi stress oxy hóa. Điều này đã được quan sát thấy ở nhiều dòng tế bào người với các nguyên bào sợi đặc biệt nhạy cảm [169-171]. Sự lão hóa do stress oxy hóa gây ra cũng đã được chứng minh ở các tế bào thận bình thường và được xác định là một yếu tố góp phần gây ra bệnh thận do tiểu đường ở mô hình động vật và bệnh nhân tiểu đường loại 2 [169, 172, 173]. Phản ứng lão hóa đối với stress oxy hóa có thể bao gồm sự gia tăng khối lượng ty thể và số lượng bản sao mtDNA [174]. Mặc dù mtDNA tuần hoàn tăng đã được phát hiện ở những bệnh nhân mắc bệnh tiểu đường loại 2 [98, 175], nhưng có thể các tế bào lão hóa dễ bị ảnh hưởng bởi ROS và NOS hơn, thay vì tạo ra trạng thái bảo vệ. Ví dụ, các tế bào podocytes thận tồn tại dưới dạng các tế bào biệt hóa về mặt chức năng tương đương với các tế bào lão hóa, nhưng rất dễ bị stress oxy hóa. Có bằng chứng cho thấy rằng sự biệt hóa của các tế bào này xảy ra trong bệnh tiểu đường, cho thấy sự thoát khỏi chu kỳ tế bào bị ngừng lại [108] và dẫn đến mất tế bào mỡ. Mất tế bào vỏ, được đo bằng bài tiết nước tiểu, có liên quan đến bệnh lý cầu thận sớm ở bệnh nhân tiểu đường [176].
-
- Quá trình chuyển đổi tính thấm của ty thể như một con đường dẫn đến tổn thương thận
Vì thận dựa vào quá trình phosphoryl hóa oxy hóa (OXPHOS) để cung cấp số lượng lớn ATP cần thiết cho quá trình tái hấp thu ở ống thận [177], nên không có gì ngạc nhiên khi cân bằng nội môi ty thể là điều cần thiết để thận hoạt động tối ưu. Thật vậy, trong bệnh thận do tiểu đường thực nghiệm hoặc các tế bào ống lượn gần tiếp xúc với glucose cao, hàm lượng ATP trong ty thể [178] và sản xuất [179, 180] bị cạn kiệt. Ty thể có thể bù đắp cho việc giảm sản xuất ATP của tế bào bằng phản ứng tổng hợp. Cơ chế này là một phản ứng thích ứng hiệu quả, như đã thấy trước đây ở các cơ quan khác [181]. Đáng chú ý, những thay đổi về hình thái ty thể trong ống lượn gần ở cả người [182] và mô hình động vật của bệnh thận do tiểu đường ở giai đoạn sớm [183] từ lâu đã được xác định là một phần của bệnh, với sự phình to và sưng nề của ty thể. Sự gia tăng do bệnh tiểu đường gây ra trong ROS/NS các gốc tự do có nguồn gốc từ ty thể đã được chứng minh là gây ra những thay đổi năng động về hình dạng của ty thể [184]. Một tác nhân kích thích khác của sự thay đổi hình dạng ty thể là cảm ứng chuyển đổi tính thấm của ty thể. Cơ chế này độc lập với bộ máy hoạt động của ty thể và stress oxy hóa, và đã được phát hiện từ lâu bằng hình ảnh trong kính hiển vi điện tử cho thấy sự sưng nề của ty thể.
Quá trình chuyển đổi tính thấm của ty thể (mPT) là sự gia tăng đột ngột tính thấm của màng trong ty thể (IMM) cho phép các chất hòa tan có khối lượng phân tử nhỏ hơn 1.500 Da đi qua. Sự kiện này là do mở khóa lỗ chuyển tiếp tính thấm của ty thể (mPTP), một kênh tiến hóa và được bảo tồn cao [185]. Lỗ chân lông được mở khóa cho phép tiêu tan ngay lập tức điện thế xuyên màng ty thể và dòng chất hòa tan, gây ra ma trận của sự giãn nở và sưng nề ty thể. Việc mất điện thế màng trong ty thể và không có khả năng duy trì độ chênh lệch pH do dòng proton cũng làm gián đoạn quá trình tổng hợp ATP của ty thể, dẫn đến cạn kiệt năng lượng; mở liên tục có thể gây chết tế bào hoại tử [186]. Sự trương nở đầy đủ của ma trận ty thể có thể dẫn đến vỡ màng ngoài ty thể. Điều này gây ra sự giải phóng cytochrom c với sự kích hoạt caspase sau đó và dẫn đến quá trình chết theo chương trình của tế bào [187]. Việc mở mPTP ngăn cản ty thể tạo ra ATP bằng OXPHOS và cho phép đảo ngược quá trình tổng hợp ATP của FoF1, gây ra sự thủy phân ATP được tạo ra bởi quá trình đường phân hoặc bất kỳ ty thể chức năng nào còn lại [178].
mPTP bao gồm nhiều thành phần đại phân tử chưa được mô tả đầy đủ [178, 180, 181]. Ban đầu, người ta cho rằng mPTP bao gồm adenine nucleotide translocase (ANT), kênh anion phụ thuộc điện áp (VDAC) và thành phần điều hòa không hình thành lỗ cyclophilin D (CypD), dạng đồng phân ti thể của peptidylprolyl cis-trans isomerase cyclophilin gia đình đi kèm [188, 189]. Người ta cho rằng mPTP được tạo ra dưới dạng một lỗ liền kề bao trùm không gian liên màng [190]. Tuy nhiên, các nghiên cứu cắt bỏ gen cho rằng VDAC và ANT chỉ đóng một vai trò hạn chế trong mPT [191-193]. Ngoài ra, một vai trò quan trọng đối với CypD trong mPT đã được thiết lập thông qua sự phát triển của chuột thiếu CypD (Ppif-/-) có ty thể không trải qua mPT nhạy cảm với syclosporin A (CsA) [194]. CypD được coi là điều chỉnh mPT bằng cách tạo điều kiện thuận lợi cho sự thay đổi về hình dạng do canxi kích hoạt trong mPTP, chuyển nó sang trạng thái mở [195]. Chuột thiếu CypD (Ppif-/-) được bảo vệ khỏi tổn thương do thiếu máu cục bộ/tái tưới máu của tim và thiếu máu não cục bộ, cho thấy vai trò của việc mở mPT phụ thuộc CypD và chết tế bào hoại tử sau đó trong tổn thương nội tạng [194, 196]. Hơn nữa, tế bào gan chuột từ chuột thiếu CypD cho thấy khả năng chống lại sự chết tế bào hoại tử do ROS và quá tải canxi [197]. Trong một mô hình cập nhật của mPTP, các bộ điều chỉnh độ sáng của enzym tổng hợp F1Fo ATP tạo thành mPTP trong IMM, với CypD liên kết với cuống bên của enzym tổng hợp FoF1 ATP [198]. Các nghiên cứu sâu hơn đã xác định vòng tiểu đơn vị c của fo (tức là ab2c10-14, danh pháp Escherichia coli) của foF1 ATP synthase để tạo thành lỗ bên trong của mPTP [199]. Tuy nhiên, mô hình này vẫn chưa được xác nhận.
Quá trình chuyển đổi tính thấm của ty thể được gây ra bởi sự cô lập hàm lượng canxi cao trong ty thể và bị nhạy cảm bởi các yếu tố như giảm mức ATP, phốt phát vô cơ và pH kiềm [178]. Hydrogen peroxide và ROS khác có thể dẫn đến cảm ứng mPT [200]. mPT cũng có thể tạo ra những thay đổi đối với chuỗi hô hấp của ty thể, bao gồm ức chế phức hợp I [201] và mất cytochrom c [202]. Cả hai điều kiện này đều góp phần làm giảm và giảm tốc độ dòng điện tử thông qua chuỗi hô hấp, thuận lợi cho việc giảm một điện tử của oxy phân tử. Cuối cùng, những sự kiện này dẫn đến việc tạo ra các gốc superoxide [203, 204]. Mất cytochrom c từ IMS của ty thể làm giảm quá trình tổng hợp ATP, đồng thời làm tăng thêm sự rò rỉ điện tử và tạo ROS, thiết lập một chu trình chuyển tiếp thức ăn của quá trình tạo ROS do ROS gây ra [205]. Một nghiên cứu gần đây đã phát hiện ra rằng Bax làm trung gian mở mPTP, điều này có thể gây ra sự cạn kiệt ATP và hoại tử tế bào [206].
Gần đây, vai trò của mPT có liên quan đến tổn thương ở thận. Phù nề ty thể trong ống lượn gần của thận đã được chứng minh trong bệnh thận do tiểu đường được thử nghiệm giai đoạn sớm [183] và ở thận của bệnh nhân tiểu đường [182]. Chuột Ppif-/- được bảo vệ khỏi tổn thương thận do thiếu máu cục bộ cấp tính [207]. Hơn nữa, trong một mô hình bệnh tiểu đường do streptozotocin (STZ) gây ra trong thời gian ngắn, những con chuột được điều trị bằng cyclosporin A (CsA), một chất ức chế mPT, đã được bảo vệ chống lại sự phì đại cầu thận và tích tụ chất nền ngoại bào (ECM) [208]. Một nghiên cứu trước đây đã gợi ý rằng ty thể thận từ chuột Goto-Kakizaki, một mô hình của bệnh tiểu đường loại 2, đã tăng cường mPT. Tuy nhiên, mPT chỉ được đo gián tiếp bằng dòng canxi ngoài ty thể và sự cải thiện của nó bằng CsA trong ống nghiệm [209]. Các nghiên cứu gần đây từ phòng thí nghiệm của chúng tôi đã gợi ý rằng mPT là một ứng cử viên để điều hòa tổn thương thận do ROS gây ra [179]. Tuy nhiên, sự gián đoạn trong mPT sinh lý và các hậu quả tiếp theo, bao gồm cả chết tế bào, chưa được nghiên cứu rộng rãi trong các mô hình bệnh thận do tiểu đường. Có thể là sự tăng tính nhạy cảm với mPT góp phần vào sự phát triển của bệnh thận do tiểu đường.
Tóm lại, stress oxy hóa do bệnh tiểu đường gây ra có thể kích thích nhiều con đường tế bào mà cuối cùng dẫn đến chết tế bào. Các kiểu chết tế bào khác nhau có thể xảy ra tùy thuộc vào các phần của tế bào bị tổn thương, như minh họa trong Hình Hình22. Apoptosis, chủ yếu được gây ra bởi sự hình thành MOMP, sự co lại của ty thể và giải phóng cytochrom c, kích hoạt caspase thông qua các con đường bên trong hoặc bên ngoài. Hoại tử gây ra bởi sự hình thành MPTP dẫn đến sưng nề và ly giải ty thể. Như đã nhấn mạnh trong tổng quan này, có thể tìm thấy bằng chứng về các con đường chết tế bào chính này ở thận của bệnh nhân tiểu đường.

Hình 2: Hậu quả chết người của ROS/NSss
Sự hiện diện của các gốc tự do ROS/NS ở mức cao có thể dẫn đến việc kích hoạt xuôi dòng các con đường chết tế bào. Loại tế bào chết xảy ra phụ thuộc vào các bộ phận của tế bào bị hư hại. Ví dụ, tổn thương protein bị oxy hóa có thể gây ra stress ER và làm trung gian cho sự chết tế bào độc lập với ty thể. Tuy nhiên, nhiễu xuyên tâm với ty thể có thể gây ra quá trình chết theo chương trình thông qua việc giải phóng cytochrom c nếu có các kích thích phù hợp. Tổn thương DNA bởi các gốc tự do ROS/NS có thể tạo ra một loạt các con đường truyền tín hiệu, bao gồm cả việc điều chỉnh lại biểu hiện gen của các dấu hiệu bề mặt tế bào FAS-L và TRAIL. Những dấu hiệu này khuyến khích các tế bào miễn dịch gây độc tế bào liên kết và kích hoạt con đường tự hủy bên ngoài. Hơn nữa, giao tiếp với ty thể có thể dẫn đến chết theo chương trình hoặc hoại tử tế bào nếu ATP bị cạn kiệt. Kích hoạt Bax và Bak có thể gây ra sự hình thành và mở lỗ chân lông của ty thể, dẫn đến sưng nề và hoại tử ty thể hoặc chết theo chương trình thông qua giải phóng cytochrom c. Quá trình này có thể bị chặn bởi protein chống apoptotic BCl-2. Sự tồn tại của các gốc tự do ROS/NS trong bệnh tiểu đường có thể dẫn đến mất khối lượng tế bào và sau đó làm giảm chức năng thận.
-
- Nhắm mục tiêu ROS ty thể trong bệnh thận đái tháo đường
Mặc dù ngày càng có nhiều bằng chứng ủng hộ vai trò của stress oxy hóa ty thể trong bệnh thận do tiểu đường thực nghiệm, nhưng bằng chứng từ các thử nghiệm lâm sàng sử dụng chất chống oxy hóa đã không xác nhận tác dụng có lợi. Ví dụ, trong thử nghiệm Đánh giá Dự phòng Kết quả Tim mạch (HOPE), điều trị bằng vitamin E trong 4,5 năm không mang lại lợi ích về kết quả tim mạch hoặc bệnh thận [13]. Thiếu tính đặc hiệu và không nhắm mục tiêu chính xác các vị trí sản xuất ROS là hai lý do thường được đề cập đến về khả năng thất bại của vitamin E trong phòng khám. Do đó, ý tưởng nhắm mục tiêu cụ thể vào gốc tự do ROS trong các bào quan sản xuất gốc tự do ROS như ty thể đã được nghiên cứu. Chiến lược này nhằm mục đích tăng tính đặc hiệu và tránh nhắm mục tiêu ROS sinh lý quan trọng bên ngoài ty thể vì ROS như vậy có thể cần thiết cho tín hiệu tế bào. Do đó, các chất chống oxy hóa nhắm mục tiêu vào ty thể đã được đề xuất như một chiến lược điều trị tiềm năng [210] để ngăn ngừa bệnh thận do cisplatin gây ra [211], tổn thương thận cấp tính [212], thận mạn tính CKD và bệnh thận do tiểu đường. Chiến lược này cũng có thể hứa hẹn điều trị các bệnh tim mạch [213].
Các chất chống oxy hóa hiệu quả nhất sẽ là những chất có thể xuyên qua màng bên ngoài và bên trong ty thể. Do đó, chất chống oxy hóa được kết hợp với cation triphenylphosphonium tích điện dương (TPP+) để tạo ra các hợp chất như chất tương tự quinone, mitoquinone (Mito Q), SkQ1 và SkQR1, cũng như mitovitamin E, mitophenyltertbutyline và Mito-CP bắt chước SOD [212] . Các chất chống oxy hóa này tích lũy trong ma trận ty thể ở nồng độ cao hơn nhiều lần so với trong khoang tế bào do tiềm năng màng âm tính cao của IMM. Một nghiên cứu của Chacko et al. ở chuột Ins2-Akita mắc bệnh tiểu đường loại 1 cho thấy rằng uống MitoQ trong 12 tuần đã ngăn ngừa tổn thương thận do tiểu đường [214]. Xơ kẽ và tổn thương cầu thận giảm đáng kể ở động vật được điều trị. MitoQ cũng làm giảm biểu hiện của các yếu tố phiên mã pro-fibrotic phospho-Smad2 và 3, đồng thời ngăn chặn sự tích lũy hạt nhân của-catenin, một thành viên của con đường Wnt có liên quan đến các quá trình bệnh lý như xơ hóa. Tương tự như vậy, Mito-CP, chất mô phỏng SOD bao gồm một nitroxide cation ưa mỡ kết hợp với TPP+, ngăn ngừa tổn thương thận do cisplatin gây ra bằng cách hạn chế hiệu quả các gốc tự do stress oxy hóa và nitro hóa, ngăn ngừa tổn thương cấu trúc ty thể và tổn thương ống thận, giảm viêm thận, ngăn ngừa rối loạn chức năng thận, và giảm sự chết tế bào thận ở chuột đực C57Bl/6J 6-8 tuần tuổi [211].
Các chiến lược khác để tăng khả năng chống oxy hóa trong ty thể bao gồm biểu hiện quá mức hemeoxygenase-1 (HO-1), một loại enzyme chống oxy hóa thường không có trong ty thể [215]. Để đạt được điều này, một plasmid chứa trình tự tính thấm của ty thể đã được hợp nhất với trình tự gen HO-1 và được truyền vào các tế bào biểu mô thận HEK293. Kết quả là, các tế bào biểu hiện Mito-HO-1 được bảo vệ khỏi sự chết của tế bào phụ thuộc vào tình trạng thiếu oxy và mất tiềm năng màng ty thể. Tuy nhiên, việc điều trị bị ảnh hưởng bởi những hạn chế lâu dài do tác động tiêu cực đến các protein ty thể chứa heme.
Ebselen là một chất mô phỏng tổng hợp có chứa selenocyteine của enzyme tế bào và ty thể glutathione peroxidase-1 (GPx1) [216], Trong mô hình chuột loại bỏ ApoE mắc bệnh tiểu đường loại 1 của chúng tôi, ebselen có tác dụng bảo vệ thận, giảm viêm thận và xơ hóa [21, 217]. Ebselen đã được chứng minh là có thể đi vào ma trận ty thể mà không cần trình tự dẫn đầu. Nó được kích hoạt bởi hệ thống glutathione và thioredoxin nội sụn, làm cho nó trở thành một liệu pháp cực kỳ hấp dẫn đối với bệnh thận do tiểu đường [218]. Tóm lại, những kết quả này ủng hộ giả thuyết rằng các liệu pháp nhắm mục tiêu vào ty thể có thể có lợi trong điều trị bệnh thận do tiểu đường.
Một cách tiếp cận khác là phát triển các tetrapeptide Szeto-Schiller (SS) nhắm mục tiêu ty thể liên kết với cardiolipin trên IMM. Phức hợp SS tetrapeptide/cardiolipin bảo vệ cardiolipin khỏi tác hại của quá trình peroxy hóa bởi cytochrom c, do đó bảo vệ lớp sừng của ty thể và duy trì cấu trúc cũng như chức năng của ty thể. Việc sử dụng peptit SS-31, được biết là loại bỏ ROS và ức chế mở mPTP, bảo vệ cấu trúc và chức năng của ty thể. Trong một mô hình chuột bị tổn thương thận do thiếu máu cục bộ, nó đã tăng tốc độ phục hồi ATP, giảm quá trình chết theo chương trình và hoại tử của các tế bào ống thận, và loại bỏ rối loạn chức năng ống thận [219]. Hơn nữa, peptide SS-31 làm giảm stress oxy hóa qua trung gian thiếu máu cục bộ/tái tưới máu và phản ứng viêm trong các tế bào hình ống. Peptide SS được gọi là Bendavia (Stealth Peptide, Trung tâm Newton, Massachusetts) đã được đưa vào phòng khám như một thử nghiệm ngẫu nhiên có kiểm soát giai đoạn 2a (EMBRACE STEMI) để đánh giá tính an toàn, khả năng dung nạp và hiệu quả của nó đối với tổn thương do tái tưới máu ở bệnh nhân sau nhồi máu cơ tim [220 ]. Một thử nghiệm lâm sàng thứ hai sẽ đánh giá hiệu quả của Bendavia đối với các thông số về thận (tốc độ lọc cầu thận ước tính (eGFR), thể tích và tưới máu thận, tình trạng viêm và độ thẩm thấu nước tiểu). Đây là một chiến lược đầy hứa hẹn để phục hồi tổn thương ty thể, nhưng trước tiên cần được thử nghiệm tiền lâm sàng trên các mô hình bệnh thận do tiểu đường.
Chiến lược nhắm mục tiêu cụ thể vào mPTP đã chứng kiến sự phát triển của các chất ức chế mở mPTP như cyclosporin A (CsA) hoặc sanglifehrin A [221]. CsA là chất ức chế miễn dịch và ức chế mPT nổi tiếng; nó hoạt động thông qua ức chế hoạt động peptidyl-prolyl cis-trans isomerase (PPIase) của cyclophilin D [222, 223]. Trên lâm sàng, CsA đã cho thấy lợi ích trong việc giảm tổn thương do thiếu máu cục bộ/tái tưới máu cơ tim ở người [224]. Tuy nhiên, CsA gây độc cho thận [225] và tương tác với con đường calcineurin, được kích hoạt trong bệnh thận do tiểu đường [208]. Những đặc tính bất lợi này hạn chế ứng dụng của nó trong điều trị bệnh thận do tiểu đường. Các chất tương tự của CsA đã được tạo ra, bao gồm Debio-025 (Alisporivir). Debio-025 không ức chế miễn dịch [226] và không giống như CsA, nó không thể hiện ái lực với calcineurin [227], nhưng nó ức chế chọn lọc cyclophilin D, ngăn chặn sự chết của tế bào [228, 229] và phục hồi chức năng ty thể [230]. Cho đến nay, Debio-025 chưa được thử nghiệm trong các mô hình thử nghiệm bệnh tiểu đường.
MitoTempo là một SOD1 được nhắm mục tiêu theo ty thể. Để đối phó với việc sản xuất ROS quá mức và quá tải canxi, nó ngăn chặn việc mở mPTP trong các tế bào biểu mô ống lượn gần được nuôi cấy [231]. Ngoài ra, một nghiên cứu gần đây nhắm mục tiêu glycogen synthase kinase (GSK) 3β thông qua việc sử dụng 4-benzyl-2-methyl-1,2,4-thiadiazolidine-3,5-dione (TDZD-8), một phân tử nhỏ có tính chọn lọc cao. chất ức chế GSK3β, đã cho thấy nhiều hứa hẹn trong việc bảo vệ các tế bào podocytes chống lại sự mở mPTP, sản xuất ROS và quá trình chết theo chương trình do adriamycin gây ra [232].
Các phương pháp điều trị khác đã cải thiện điểm cuối của bệnh thận do đường bằng cách tăng khả năng chống oxy hóa thông qua việc điều chỉnh lại các gen phản ứng chống oxy hóa bằng cách sử dụng các chất kích hoạt Nrf2 như bardoxolone methyl [233, 234], curcumin [235], sulforaphane [236], cinnamic aldehyde [236], resveratrol [ 237], và ebselen [21]. Các nghiên cứu gần đây đã chỉ ra rằng metformin, một loại thuốc uống hạ đường huyết, có đặc tính chống oxy hóa và có hiệu quả trong việc hạ thấp các tiêu chí cuối cùng của bệnh thận đái tháo đường trong mô hình chuột [238]. Các nghiên cứu khác đã điều tra việc nhắm mục tiêu của các con đường giảm phân với hy vọng hạn chế sự tích tụ của các ty thể bị phân mảnh trong vỏ thận, một quá trình được chứng minh là có liên quan đến sự phát triển của bệnh thận do tiểu đường [34]. Hơn nữa, một số phương pháp điều trị, không nhất thiết nhắm vào ty thể, đã bao gồm mangiferin, một hợp chất C-glucosyl xanthone và polyhydroxy polyphenol tự nhiên đã cho thấy khả năng bảo vệ chống lại bệnh thận do tiểu đường ở chuột Wistar mắc bệnh tiểu đường do STZ thông qua các cơ chế khác nhau, bao gồm ức chế PKC, MAPKs (p38, JNK và ERK1/2), các lộ trình NF-κB và TGF-β1 [239].
Cuối cùng, việc nhắm mục tiêu cụ thể nguồn enzym chính của các gốc tự do ROS/NS trong thận, NOX4, với các chất ức chế NOX1/NOX4 cụ thể đã cho thấy tiềm năng to lớn trong điều trị bệnh thận do tiểu đường [240], như đã thảo luận trước đó trong phần 3. Chưa rõ liệu những chất ức chế này có xâm nhập vào ty thể hay không, nhưng bằng chứng gần đây cho thấy rằng chúng làm trung gian cho tác dụng ức chế của chúng đối với NOX4, và do đó chúng tác động đến bệnh thận do tiểu đường thông qua các con đường bao gồm các enzyme nằm trong ty thể [56]. Sự tồn tại của các chất ức chế NOX khác nhau như chất ức chế pan-NOX, VAS2870 và VAS3947 [241], đang chờ phân tích tiền lâm sàng sâu hơn về hiệu quả của chúng trong việc ngăn ngừa hoặc đảo ngược bệnh thận do tiểu đường. Chất ức chế NOX1/NOX4 cụ thể hơn, GKT137831, được phát triển bởi Genkyotex, đã hoàn thành các thử nghiệm lâm sàng giai đoạn 1 với kết quả đáng khích lệ về tính an toàn và khả năng dung nạp. Một nghiên cứu lâm sàng giai đoạn 2 hiện đã được lên kế hoạch ở những bệnh nhân mắc bệnh thận do tiểu đường [242].
-
- Phần kết luận và triển vọng tương lai
Bệnh thận do tiểu đường là nguyên nhân hàng đầu của suy thận giai đoạn cuối ESRD. Mặc dù có những tiến bộ đáng kể trong sự hiểu biết về các cơ chế tế bào chịu trách nhiệm cho sự khởi đầu và tiến triển của nó, nhưng nó vẫn khó nắm bắt về mặt trị liệu. Rõ ràng là việc kiểm soát đường huyết và huyết áp là không đủ để ngăn chặn sự tiến triển của nó, và các lựa chọn điều trị mới, hiệu quả hơn là rất cần thiết. Mục tiêu điều trị của ty thể thận mắc bệnh tiểu đường là một lĩnh vực tương đối mới đã thu hút được sự chú ý do sự tham gia của ty thể trong con đường chết tế bào như apoptosis và hoại tử liên quan đến các loại tế bào quan trọng như tế bào podocytes.
Sự tham gia của các gốc tự do stress oxy hóa và nitro hóa trong việc làm trung gian cho nhiều thay đổi quan sát được đã tập trung sự chú ý vào các chất chống oxy hóa nhắm mục tiêu cụ thể vào ty thể. Một số cách tiếp cận đã được thử, như được nêu trong tổng quan này, với cách tiếp cận nhiều sắc thái hơn cần thiết để khôi phục cân bằng nội môi oxy hóa khử thay vì làm cạn kiệt các chất oxy hóa quan trọng cần thiết để truyền tín hiệu. Sự liên quan đan xen của stress ER với stress oxy hóa có nghĩa là các mục tiêu mới có thể được tìm thấy bằng cách kiểm tra kỹ hơn các con đường do stress ER gây ra.
Ngăn chặn hậu quả của việc tăng các gốc tự do ROS/NS đối với tổn thương DNA hạt nhân và ty thể thông qua giám sát tăng cường bằng cơ chế sửa chữa DNA có thể đưa ra một giải pháp thay thế. Ngăn chặn sự hình thành lỗ chân lông mPT là một lĩnh vực mới khác có khả năng điều chỉnh tổn thương thận. Chỉ bằng cách phân tích cẩn thận các cơ chế tế bào chi phối tổn thương thận do tiểu đường, các mục tiêu mới sẽ được công nhận và xác minh tiền lâm sàng trước khi dịch chuyển vào phòng khám. Những phương pháp này hứa hẹn sẽ mở đường cho các lựa chọn điều trị mới, hiệu quả hơn đối với bệnh thận do tiểu đường.
Tài liệu tham khảo
1. Zimmet P, Alberti KG, Shaw J. Ý nghĩa toàn cầu và xã hội của dịch bệnh tiểu đường. Tự nhiên. 2001;414(6865):782–787. [Tóm tắt] [Google Scholar]
2. Spiegel AM, Nabel EG. Nghiên cứu của NIH về bệnh béo phì và bệnh tiểu đường loại 2: cung cấp cơ sở bằng chứng khoa học cho các hành động cải thiện sức khỏe. Nat Med. 2006;12(1):67–69. [Tóm tắt] [Google Scholar]
3. Shaw JE, Sicree RA, Zimmet PZ. Ước tính toàn cầu về tỷ lệ mắc bệnh tiểu đường cho năm 2010 và 2030. Phòng khám bệnh tiểu đường Res Clin Pract. 2010;87(1):4–14. [Tóm tắt] [Google Scholar]
4. Sarnak MJ, Levey AS, Schoolwerth AC, Coresh J, Culleton B, Hamm LL, McCullough PA, Kasiske BL, Kelepouris E, Klag MJ. et al. Bệnh thận là một yếu tố nguy cơ phát triển bệnh tim mạch: một tuyên bố từ Hội đồng Hiệp hội Tim mạch Hoa Kỳ về Thận trong Bệnh Tim mạch, Nghiên cứu Huyết áp Cao, Tim mạch Lâm sàng, Dịch tễ học và Phòng ngừa. tăng huyết áp. 2003;42(5):1050–1065. [Tóm tắt] [Google Scholar]
5. Schiele F. Rối loạn chức năng thận và bệnh mạch vành: sự kết hợp có nguy cơ cao. J Nephrol. 2009;22(1):39–45. [Tóm tắt] [Google Scholar]
6. Dinneen SF, Gerstein HC. Mối liên quan của microalbumin niệu và tỷ lệ tử vong ở bệnh đái tháo đường không phụ thuộc insulin. Tổng quan có hệ thống về văn học. Arch thực tập Med. 1997;157(13):1413–1418. [Tóm tắt] [Google Scholar]
7. Gerstein HC, Mann JF, Yi Q, Zinman B, Dinneen SF, Hoogwerf B, Halle JP, Young J, Rashkow A, Joyce C. et al. Albumin niệu và nguy cơ biến cố tim mạch, tử vong và suy tim ở người mắc bệnh tiểu đường và không mắc bệnh tiểu đường. JAMA. 2001;286(4):421–426. [Tóm tắt] [Google Scholar]
8. Mittal M, Siddiqui MR, Trần K, Reddy SP, Malik AB. Các loại oxy phản ứng trong viêm và chấn thương mô. Antioxid Redox Signal. 2014;20(7):1126–1167. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
9. Jha JC, Gray SP, Barit D, Okabe J, El-Osta A, Namikoshi T, Thallas-Bonke V, Wingler K, Szyndralewiez C, Heitz F. et al. Nhắm mục tiêu di truyền hoặc ức chế dược lý của NADPH oxidase nox4 cung cấp khả năng bảo vệ thận trong bệnh thận đái tháo đường lâu dài. J Am Sóc Nephrol. 2014;25(6):1237–1254. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
10. Tonelli M, Sacks F, Pfeffer M, Jhangri GS, Curhan G Các nhà điều tra thử nghiệm về cholesterol và các sự kiện tái phát (CARE). Dấu ấn sinh học của viêm và tiến triển của bệnh thận mãn tính. Thận Int. 2005;68(1):237–245. [Tóm tắt] [Google Scholar]
11. Okamura DM, Himmelfarb J. Làm mất cân bằng oxy hóa khử của stress oxy hóa trong con đường xơ hóa trong bệnh thận mãn tính. Pediatr Nephrol. 2009;24(12):2309–2319. [Tóm tắt] [Google Scholar]
12. McQueen MJ, Lonn E, Gerstein HC, Bosch J, Yusuf S. Nghiên cứu HY VỌNG (Đánh giá Dự phòng Kết quả Tim mạch) và hậu quả của nó. Scand J Clin Lab Đầu tư Suppl. 2005;240:143–156. [Tóm tắt] [Google Scholar]
13. Lonn E, Yusuf S, Hoogwerf B, Pogue J, Yi Q, Zinman B, Bosch J, Dagenais G, Mann JF, Gerstein HC. Tác dụng của vitamin E đối với kết quả tim mạch và vi mạch ở những bệnh nhân có nguy cơ cao mắc bệnh tiểu đường: kết quả của nghiên cứu HOPE và nghiên cứu phụ MICRO-HOPE. Chăm sóc bệnh tiểu đường. 2002;25(11):1919–1927. [Tóm tắt] [Google Scholar]
14. Marchioli R, Levantesi G, Macchia A, Marfisi RM, Nicolosi GL, Tavazzi L, Tognoni G, Valagussa F. Vitamin E làm tăng nguy cơ phát triển suy tim sau nhồi máu cơ tim: Kết quả từ thử nghiệm GISSI-Prevenzione. J Cardiovasc Med (Hagerstown) 2006;7(5):347–350. [Tóm tắt] [Google Scholar]
15. Hakim FA, Pflueger A. Vai trò của stress oxy hóa trong bệnh thận do tiểu đường. Med Khoa học Monit. 2010;16(2):RA37–RA48. [Tóm tắt] [Google Scholar]
16. Onozato ML, Tojo A, Goto A, Fujita T, Wilcox CS. stress oxy hóa và tổng hợp oxit nitric trong bệnh thận đái tháo đường ở chuột: tác dụng của ACEI và ARB. Thận Int. 2002;61(1):186–194. [Tóm tắt] [Google Scholar]
17. Chander PN, Gealekman O, Brodsky SV, Elitok S, Tojo A, Crabtree M, Gross SS, Goligorsky MS. Bệnh thận ở chuột béo mắc bệnh tiểu đường Zucker có liên quan đến stress oxy hóa và nitro hóa: phòng ngừa bằng liệu pháp mãn tính với chất tẩy peroxynitrite ebselen. J Am Sóc Nephrol. 2004;15(9):2391–2403. [Tóm tắt] [Google Scholar]
18. Kakimoto M, Inoguchi T, Sonta T, Yu HY, Imamura M, Etoh T, Hashimoto T, Nawata H. Tích lũy 8-hydroxy-2′-deoxyguanosine và xóa DNA ty thể ở thận của chuột mắc bệnh tiểu đường. Bệnh tiểu đường. 2002;51(5):1588–1595. [Tóm tắt] [Google Scholar]
19. Ha H, Lee HB. Các loại oxy phản ứng khuếch đại tín hiệu glucose trong các tế bào thận được nuôi cấy dưới glucose cao và ở bệnh nhân tiểu đường. Thận học (Carlton) 2005;10(Bổ sung):S7–S10. [Tóm tắt] [Google Scholar]
20. Lee HB, Yu MR, Yang Y, Jiang Z, Ha H. Các con đường truyền tín hiệu do loài oxy phản ứng điều hòa trong bệnh thận đái tháo đường. J Am Sóc Nephrol. 2003;14(8 Bổ sung 3):S241–S245. [Tóm tắt] [Google Scholar]
21. Chew P, Yuen DY, Stefanovic N, Pete J, Coughlan MT, Jandeleit-Dahm KA, Thomas MC, Rosenfeldt F, Cooper ME, de Haan JB. Tác dụng chống xơ vữa động mạch và bảo vệ thận của ebselen ở bệnh nhân tiểu đường apolipoprotein E/G
Px1-con chuột hạ gục đôi. Bệnh tiểu đường. 2010;59(12):3198–3207. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
22. Xiao H, Li Y, Qi J, Wang H, Liu K. Peroxynitrite đóng một vai trò quan trọng trong các tổn thương cầu thận ở chuột mắc bệnh tiểu đường. J Nephrol. 2009;22(6):800–808. [Tóm tắt] [Google Scholar]
23. Gorin Y, Block K, Hernandez J, Bhandari B, Wagner B, Barnes JL, Abboud HE. Nox4 NAD(P)H oxidase làm trung gian biểu hiện phì đại và fibronectin ở thận đái tháo đường. Hóa chất sinh học J. 2005;280(47):39616–39626. [Tóm tắt] [Google Scholar]
24. Kanauchi M, Nishioka H, Hashimoto T. Tổn thương DNA oxy hóa và tổn thương ống kẽ thận ở bệnh thận đái tháo đường. nephron. 2002;91(2):327–329. [Tóm tắt] [Google Scholar]
25. Hinokio Y, Suzuki S, Hirai M, Suzuki C, Suzuki M, Toyota T. Bài tiết nước tiểu của 8-oxo-7, 8-dihydro-2′-deoxyguanosine như một yếu tố dự báo sự phát triển của bệnh thận do tiểu đường. bệnh tiểu đường. 2002;45(6):877–882. [Tóm tắt] [Google Scholar]
26. Evans JL, Goldfine ID, Maddux BA, Grodsky GM. stress oxy hóa và con đường truyền tín hiệu kích hoạt stress : một giả thuyết thống nhất về bệnh tiểu đường loại 2. Endocr Rev. 2002;23(5):599–622. [Tóm tắt] [Google Scholar]
27. Studer RK, Craven PA, DeRubertis FR. Sự ức chế chống oxy hóa của protein kinase tăng tín hiệu C trong việc chuyển đổi yếu tố tăng trưởng-beta trong các tế bào trung mô. Sự trao đổi chất. 1997;46(8):918–925. [Tóm tắt] [Google Scholar]
28. Ha H, Lee HB. Các loại oxy phản ứng như các phân tử tín hiệu glucose trong các tế bào trung mô được nuôi cấy dưới glucose cao. Thận Int Suppl. 2000;77:S19–S25. [Tóm tắt] [Google Scholar]
29. Biên giới WA, Quý tộc NA. TGF-beta trong xơ hóa thận: mục tiêu của liệu pháp gen. Thận Int. 1997;51(5):1388–1396. [Tóm tắt] [Google Scholar]
30. Yamamoto T, Noble NA, Miller DE, Border WA. Sự biểu hiện bền vững của TGF-beta 1 làm nền tảng cho sự phát triển của bệnh xơ hóa thận tiến triển. Thận Int. 1994;45(3):916–927. [Tóm tắt] [Google Scholar]
31. Ha H, Yu MR, Choi YJ, Kitamura M, Lee HB. Vai trò của việc kích hoạt yếu tố hạt nhân-kappaB do glucose cao gây ra trong biểu hiện protein-1 chất hấp dẫn hóa học đơn bào bởi các tế bào trung mô. J Am Sóc Nephrol. 2002;13(4):894–902. [Tóm tắt] [Google Scholar]
32. Rhyu DY, Yang Y, Ha H, Lee GT, Song JS, Uh ST, Lee HB. Vai trò của các loại oxy phản ứng trong quá trình kích hoạt protein kinase được kích hoạt bằng mitogen do TGF-beta1 gây ra và quá trình chuyển đổi biểu mô-trung mô trong các tế bào biểu mô ống thận. J Am Sóc Nephrol. 2005;16(3):667–675. [Tóm tắt] [Google Scholar]
33. Forbes JM, Coughlan MT, Cooper ME. Stress oxy hóa là thủ phạm chính gây ra bệnh thận ở bệnh tiểu đường. Bệnh tiểu đường. 2008;57(6):1446–1454. [Tóm tắt] [Google Scholar]
34. Higgins GC, Coughlan MT. Rối loạn chức năng ty lạp thể và giảm thiểu thực bào: khởi đầu và kết thúc bệnh thận đái tháo đường? Dược phẩm Br J. 2014;171(8):1917–1942. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
35. Dorn GW thứ 2. Các cơ chế phân tử phân biệt quá trình chết theo chương trình với hoại tử được lập trình. Chất độc Pathol. 2013;41(2):227–234. [Tóm tắt] [Google Scholar]
36. Kyte J. Immunoferritin xác định sự phân bố (Na+ + K+) ATPase trên màng sinh chất của ống lượn thận. II. Đoạn gần. Sinh học tế bào J. 1976;68(2):304–318. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
37. Kyte J. Immunoferritin xác định sự phân bố (Na+ + K+) ATPase trên màng sinh chất của ống lượn thận. I. Đoạn xa. Sinh học tế bào J. 1976;68(2):287–303. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
38. Agus ZS, Chiu PJ, Goldberg M. Quy định bài tiết canxi qua nước tiểu ở chuột. Là J Physiol. 1977;232(6):F545–F549. [Tóm tắt] [Google Scholar]
39. Chen Q, Vazquez EJ, Moghaddas S, Hoppel CL, Lesnefsky EJ. Sản xuất các loại oxy phản ứng bằng ty thể: vai trò trung tâm của phức hợp III. Hóa chất sinh học J. 2003;278(38):36027–36031. [Tóm tắt] [Google Scholar]
40. St-Pierre J, Buckingham JA, Roebuck SJ, Brand MD. Cấu trúc liên kết sản xuất superoxide từ các vị trí khác nhau trong chuỗi vận chuyển điện tử của ty thể. Hóa chất sinh học J. 2002;277(47):44784–44790. [Tóm tắt] [Google Scholar]
41. Forbes JM, Ke BX, Nguyễn TV, Henstridge DC, Penfold SA, Laskowski A, Sourris KC, Groschner LN, Cooper ME, Thorburn DR, Coughlan MT. Sự thiếu hụt hoạt động của phức hợp ty thể I do chèn bẫy gen Ndufs6 gây ra bệnh thận. Antioxid Redox Signal. 2013;19(4):331–343. [Tóm tắt] [Google Scholar]
42. Maessen DE, Stehouwer CD, Schalkwijk CG. Vai trò của methylglyoxal và hệ thống glyoxalase trong bệnh tiểu đường và các bệnh liên quan đến tuổi tác khác. Khoa học lâm sàng (Luân Đôn) 2015;128(12):839–861. [Tóm tắt] [Google Scholar]
43. Gugliucci A, Menini T. Trục AGE-RAGE hòa tan RAGE và stress oxy hóa trong bệnh thận mãn tính. Adv Exp Med Biol. 2014;824:191–208. [Tóm tắt] [Google Scholar]
44. Coughlan MT, Thorburn DR, Penfold SA, Laskowski A, Harcourt BE, Sourris KC, Tan AL, Fukami K, Thallas-Bonke V, Nawroth PP. et al. ROS tế bào do RAGE gây ra thúc đẩy quá trình tạo ra superoxide của ty thể trong bệnh tiểu đường J Am Sóc Nephrol. 2009;20(4):742–752. [Châu Âu PMC miễn phí một bài viết] [Tóm tắt] [Google Scholar]
45. Rosca MG, Mustata TG, Kinter MT, Ozdemir AM, Kern TS, Szweda LI, Brownlee M, Monnier VM, Weiss MF. Glycation protein ty thể từ thận chuột mắc bệnh tiểu đường có liên quan đến sự hình thành superoxide dư thừa. Am J Physiol Thận Physiol. 2005;289(2):F420–F430. [Tóm tắt] [Google Scholar]
46. Kim KM, Kim YS, Jung DH, Lee J, Kim JS. Nồng độ glyoxalase I tăng lên sẽ ức chế sự tích tụ của stress oxy hóa và sản phẩm cuối cùng của quá trình glycation tiên tiến trong các tế bào trung mô của chuột được nuôi cấy trong môi trường glucose cao. Exp di động Res. 2012;318(2):152–159. [Tóm tắt] [Google Scholar]
47. Brownlee M. Hóa sinh và sinh học tế bào phân tử của các biến chứng tiểu đường. Tự nhiên. 2001;414(6865):813–820. [Tóm tắt] [Google Scholar]
48. Nishikawa T, Edelstein D, Du XL, Yamagishi S, Matsumura T, Kaneda Y, Yorek MA, Beebe D, Oates PJ, Hammes HP. et al. Bình thường hóa quá trình sản xuất superoxide của ty thể ngăn chặn ba con đường gây tổn thương do tăng đường huyết. Tự nhiên. 2000;404(6779):787–790. [Tóm tắt] [Google Scholar]
49. Kiritoshi S, Nishikawa T, Sonoda K, Kukidome D, Senokuchi T, Matsuo T, Matsumura T, Tokunaga H, Brownlee M, Araki E. Các loại oxy phản ứng từ ty thể gây ra biểu hiện gen cyclooxygenase-2 trong các tế bào trung mô của con người: vai trò tiềm năng trong bệnh thận đái tháo đường. Bệnh tiểu đường. 2003;52(10):2570–2577. [Tóm tắt] [Google Scholar]
50. Zhan M, Usman IM, Sun L, Kanwar YS. Sự gián đoạn kiểm soát chất lượng ty thể ở ống thận bằng Myo-inositol oxygenase trong bệnh thận do tiểu đường. J Am Sóc Nephrol. 2015;26(6):1304–1321. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
51. Bock F, Shahzad K, Wang H, Stoyanov S, Wolter J, Dong W, Pelicci PG, Kashif M, Ranjan S, Schmidt S. et al. Protein C hoạt hóa cải thiện bệnh thận do tiểu đường bằng cách ức chế ngoại di truyền enzyme oxy hóa khử p66Shc. Proc Natl Acad Sci U S A. 2013;110(2):648–653. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
52. Block K, Gorin Y, Abboud HE. Nội địa hóa của Nox4 và quy định trong bệnh tiểu đường. Proc Natl Acad Sci U S A. 2009;106(34):14385–14390. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
53. Drumond GR, Selemidis S, Griendling KK, Sobey CG. Chống lại stress oxy hóa trong bệnh mạch máu: NADPH oxyase là mục tiêu điều trị. Nat Rev Thuốc Discov. 2011;10(6):453–471. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
54. Dikalov SI, Dikalova AE, Bikineyeva AT, Schmidt HH, Harrison DG, Griendling KK. Vai trò khác biệt của Nox1 và Nox4 trong sản xuất superoxide và hydro peroxide được kích thích cơ bản và angiotensin II. Radic Biol Med miễn phí. 2008;45(9):1340–1351. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
55. Jo SH, Son MK, Koh HJ, Lee SM, Song IH, Kim YO, Lee YS, Jeong KS, Kim WB, Park JW. et al. Kiểm soát cân bằng oxy hóa khử của ty thể và bảo vệ tế bào chống lại tổn thương oxy hóa bằng isocitrate dehydrogenase phụ thuộc NADP+ của ty thể. Hóa chất sinh học J. 2001;276(19):16168–16176. [Tóm tắt] [Google Scholar]
56. You YH, Quach T, Saito R, Pham J, Sharma K. Metabolomics tiết lộ vai trò chính của fumarate trong việc làm trung gian tác động của NADPH oxidase 4 trong bệnh thận do tiểu đường. J Am Sóc Nephrol. 2015 Trên báo chí. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
57. Coughlan MT, Thallas-Bonke V, Pete J, Long DM, Gasser A, Tong DC, Arnstein M, Thorpe SR, Cooper ME, Forbes JM. Liệu pháp kết hợp với chất phá vỡ liên kết ngang của sản phẩm cuối glycation tiên tiến, alagebrium và chất ức chế men chuyển angiotensin trong bệnh tiểu đường: sức mạnh tổng hợp hay dư thừa? khoa nội tiết. 2007;148(2):886–895. [Tóm tắt] [Google Scholar]
58. Winiarska K, Focht D, Sierakowski B, Lewandowski K, Orlowska M, Usarek M. Chất ức chế NADPH oxidase, apocynin, cải thiện tình trạng glutathione thận ở chuột béo mắc bệnh tiểu đường Zucker: so sánh với melatonin. Tương tác Chem Biol. 2014;218:12–19. [Tóm tắt] [Google Scholar]
59. Weisiger RA, Fridovich I. Ty thể superoxide simutase. Trang web tổng hợp và nội địa hóa nội địa hóa. Hóa chất sinh học J. 1973;248(13):4793–4796. [Tóm tắt] [Google Scholar]
60. Das R, Xu S, Quan X, Nguyen TT, Kong ID, Chung CH, Lee EY, Cha SK, Park KS. Tái tổ chức Nox4 ty thể làm trung gian cho quá trình chết theo chương trình do TGF-beta gây ra trong các tế bào podocytes của chuột được nuôi cấy. Am J Physiol Thận Physiol. 2014;306(2):F155–F167. [Tóm tắt] [Google Scholar]
61. Habib SL. Bệnh tiểu đường và apoptosis tế bào ống thận. Bệnh tiểu đường thế giới J. 2013;4(2):27–30. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
62. Towler DA. Sự thiếu hụt ROS của ty thể và các biến chứng tiểu đường: AMP(K) điều chỉnh sự thích nghi với chứng tăng đường huyết. Đầu tư lâm sàng J. 2013;123(11):4573–4576. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
63. Dugan LL, You YH, Ali SS, Diamond-Stanic M, Miyamoto S, DeCleves AE, Andreyev A, Quách T, Ly S, Shekhtman G. et al. Rối loạn điều hòa AMPK thúc đẩy giảm chức năng superoxide và ty thể liên quan đến bệnh tiểu đường. Đầu tư lâm sàng J. 2013;123(11):4888–4899. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
64. Nishikawa T, Brownlee M, Araki E. Oxyg phản ứng ty thể vi trong cơ chế bệnh sinh của bệnh thận đái tháo đường sớm. Đầu tư bệnh tiểu đường J. 2015;6(2):137–139. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
65. Saul RL, Ames BN. Mức độ cơ bản của thiệt hại DNA trong dân số. Khoa học đời sống cơ bản. 1986;38:529–535. [Tóm tắt] [Google Scholar]
66. Ames BN, Shigenaga MK. Chất oxy hóa là một đóng góp lớn cho lão hóa. Ann N Y Acad Sci. 1992;663:85–96. [Tóm tắt] [Google Scholar]
67. Dizdaroglu M. Sửa chữa cắt bỏ cơ sở tổn thương DNA oxy hóa bằng DNA glycosylase. Đột biến Res. 2005;591(1-2):45–59. [Tóm tắt] [Google Scholar]
68. Feldenberg LR, Thevananther S, del Rio M, de Leon M, Devarajan P. Sự suy giảm một phần ATP gây ra quá trình chết theo chương trình qua trung gian Fas và caspase trong các tế bào MDCK. Là J Physiol. 1999;276(6 Pt 2):F837–F846. [Tóm tắt] [Google Scholar]
69. Eguchi Y, Srinivasan A, Tomaselli KJ, Shimizu S, Tsujimoto Y. Các bước phụ thuộc vào ATP trong truyền tín hiệu apoptotic. Ung thư Res. 1999;59(9):2174–2181. [Tóm tắt] [Google Scholar]
70. Leist M, Single B, Castoldi AF, Kuhnle S, Nicotera P. Nồng độ adenosine triphosphate (ATP) nội bào: một sự chuyển đổi trong quyết định giữa quá trình chết theo chương trình và hoại tử. J Exp Med. 1997;185(8):1481–1486. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
71. Koh DW, Dawson TM, Dawson VL. Điều hòa sự chết của tế bào bằng poly(ADP-ribose) polymerase-1. Dược phẩm Res. 2005;52(1):5–14. [Tóm tắt] [Google Scholar]
72. Hassa PO. Tính đối ngẫu phân tử “Jekyll và Hyde” của PARP1 trong quá trình chết tế bào và sự sống của tế bào. Front Biosci (Landmark Ed) 2009;14:72–111. [Tóm tắt] [Google Scholar]
73. Laval J. Vai trò của các enzyme sửa chữa DNA trong khả năng chống lại stress oxy hóa của tế bào. Pathol Biol (Paris) 1996;44(1):14–24. [Tóm tắt] [Google Scholar]
74. Hồng SJ, Dawson TM, Dawson VL. Các cuộc hội thoại hạt nhân và ty thể trong quá trình chết tế bào: tín hiệu PARP-1 và AIF. Xu hướng Pharmacol Sci. 2004;25(5):259–264. [Tóm tắt] [Google Scholar]
75. Susztak K, Raff AC, Schiffer M, Bottinger EP. Các loại oxy phản ứng do glucose gây ra quá trình tự hủy của tế bào podocytes và sự suy giảm tế bào podocyte khi bắt đầu bệnh thận đái tháo đường. Bệnh tiểu đường. 2006;55(1):225–233. [Tóm tắt] [Google Scholar]
76. Prakash A, Doublie S. Sửa chữa cắt bỏ cơ sở trong ty thể. Hóa sinh tế bào J. 2015 Trên báo chí. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
77. Bohr VA, Stevnsner T, de Souza-Pinto NC. Sửa chữa DNA ty thể của thiệt hại oxy hóa trong các tế bào động vật có vú. gen. 2002;286(1):127–134. [Tóm tắt] [Google Scholar]
78. Campalans A, Moritz E, Kortulewski T, Biard D, Epe B, Radicella JP. Tương tác với OGG1 là cần thiết để tuyển dụng XRCC1 hiệu quả để sửa chữa cắt bỏ cơ sở và duy trì sự ổn định di truyền sau khi tiếp xúc với stress oxy hóa. Sinh học tế bào Mol. 2015;35(9):1648–1658. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
79. Nakabeppu Y, Tsuchimoto D, Ichinoe A, Ohno M, Ide Y, Hirano S, Yoshimura D, Tominaga Y, Furuichi M, Sakumi K. Ý nghĩa sinh học của cơ chế bảo vệ chống lại tổn thương oxy hóa trong axit nucleic do các loại oxy phản ứng gây ra: từ ti thể đến nhân. Ann N Y Acad Sci. 2004;1011:101–111. [Tóm tắt] [Google Scholar]
80. Wu LL, Chiou CC, Chang PY, Wu JT. Nước tiểu 8-OHdG: một dấu hiệu của stress oxy hóa đối với DNA và là yếu tố nguy cơ gây ung thư, xơ vữa động mạch và bệnh nhân tiểu đường. Phòng khám Chim Acta. 2004;339(1-2):1–9. [Tóm tắt] [Google Scholar]
81. Giovannini C, Piaggi S, Federico G, Scarpato R. Nồng độ gamma-H2AX cao và quá trình oxy hóa màng tế bào ở thanh thiếu niên mắc bệnh tiểu đường loại 1. Đột biến Res. 2014;770:128–135. [Tóm tắt] [Google Scholar]
82. Prasad M, Bronson SC, Warrier T, Badarinath A, Rai S, Baid K, Sitaraman S, George A, Moses A, Saraswathy R. et al. Đánh giá tổn thương DNA ở bệnh nhân đái tháo đường týp 2 có và không có bệnh lý thần kinh ngoại vi: Một nghiên cứu ở dân số Nam Ấn Độ. J Nat Sci Biol Med. 2015;6(1):80–84. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
83. Cinkilic N, Kiyici S, Celikler S, Vatan O, Oz Gul O, Tuncel E, Bilaloglu R. Đánh giá quang sai nhiễm sắc thể, trao đổi nhiễm sắc thể chị em và vi nhân ở bệnh nhân đái tháo đường týp 1. Đột biến Res. 2009;676(1-2):1–4. [Tóm tắt] [Google Scholar]
84. Gelaleti RB, Damasceno DC, Lima PH, Salvadori DM, Calderon Ide M, Peracoli JC, Rudge MV. Tổn thương DNA oxy hóa ở phụ nữ mang thai mắc bệnh tiểu đường và tăng đường huyết nhẹ. Diabetol Metab Syndr. 2015;7:1. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
85. Gelaleti RB, Damasceno DC, Salvadori DM, Marcondes JP, Lima PH, Morceli G, Calderon IM, Rudge MV. Tính đa hình gen IRS-1 và tổn thương DNA ở phụ nữ mang thai mắc bệnh tiểu đường hoặc tăng đường huyết nhẹ trong thai kỳ. Diabetol Metab Syndr. 2015;7:30. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
86. Simone S, Gorin Y, Velagapudi C, Abboud HE, Habib SL. Cơ chế gây tổn thương DNA oxy hóa trong bệnh tiểu đường: khử hoạt tính tuberin và điều hòa giảm enzyme sửa chữa DNA 8-oxo-7,8-dihydro-2′-deoxyguanosine-DNA glycosylase. Bệnh tiểu đường. 2008;57(10):2626–2636. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
87. Xu GW, Yao QH, Weng QF, Su BL, Zhang X, Xiong JH. Nghiên cứu về 8-hydroxydeoxyguanosine trong nước tiểu như một dấu ấn sinh học của tổn thương DNA oxy hóa ở bệnh nhân mắc bệnh thận do tiểu đường. Hậu môn J Pharm Biomed. 2004;36(1):101–104. [Tóm tắt] [Google Scholar]
88. Dong QY, Cui Y, Chen L, Song J, Sun L. Nồng độ 8-hydroxydeoxyguanosine trong nước tiểu ở bệnh nhân mắc bệnh võng mạc tiểu đường. Eur J Thuốc nhỏ mắt. 2008;18(1):94–98. [Tóm tắt] [Google Scholar]
89. Valavanidis A, Vlachogianni T, Fiotakis C. 8-hydroxy-2′-deoxyguanosine (8-OHdG): Một dấu ấn sinh học quan trọng của stress oxy hóa và sinh ung thư. J Sức khỏe khoa học môi trường C Ung thư môi trường Ecotoxicol Rev. 2009;27(2):120–139. [Tóm tắt] [Google Scholar]
90. Orhan H, van Holland B, Krab B, Moeken J, Vermeulen NP, Hollander P, Meerman JH. Đánh giá một bộ chỉ dấu sinh học đa thông số đối với tổn thương oxy hóa ở người: tăng bài tiết các sản phẩm oxy hóa lipid, protein và DNA qua nước tiểu sau một giờ tập thể dục. Radic Res miễn phí. 2004;38(12):1269–1279. [Tóm tắt] [Google Scholar]
91. Lai CH, Liou SH, Lin HC, Shih TS, Tsai PJ, Chen JS, Yang T, Jaakkola JJ, Strickland PT. Tiếp xúc với khí thải giao thông và tổn thương DNA oxy hóa. Chiếm môi trường Med. 2005;62(4):216–222. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
92. Bohr VA, Dianov GL. Xử lý tổn thương DNA oxy hóa trong DNA hạt nhân và ty thể. sinh học. 1999;81(1-2):155–160. [Tóm tắt] [Google Scholar]
93. Yakes FM, Van Houten B. Tổn thương DNA ty thể rộng hơn và tồn tại lâu hơn tổn thương DNA hạt nhân trong tế bào người sau stress oxy hóa. Proc Natl Acad Sci U S A. 1997;94(2):514–519. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
94. Gao Y, Katyal S, Lee Y, Zhao J, Rehg JE, Russell HR, McKinnon PJ. DNA ligase III rất quan trọng đối với tính toàn vẹn của mtDNA nhưng không sửa chữa DNA hạt nhân qua trung gian Xrcc1. Tự nhiên. 2011;471(7337):240–244. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
95. de Souza-Pinto NC, Wilson DM, Stevnsner TV, Bohr VA. DNA ty thể, sửa chữa cắt bỏ cơ sở và thoái hóa thần kinh. Sửa chữa DNA. 2008;7(7):1098–1109. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
96. Suematsu N, Tsutsui H, Wen J, Kang D, Ikeuchi M, Ide T, Hayashidani S, Shiomi T, Kubota T, Hamasaki N, Takeshita A. Stress oxy hóa làm trung gian tổn thương và rối loạn chức năng DNA ti thể do yếu tố hoại tử khối u gây ra trong tế bào cơ tim. Vòng tuần hoàn. 2003;107(10):1418–1423. [Tóm tắt] [Google Scholar]
97. Madsen-Bouterse SA, Mohammad G, Kanwar M, Kowluru RA. Vai trò của tổn thương DNA ty thể trong sự phát triển của bệnh võng mạc tiểu đường và hiện tượng trí nhớ chuyển hóa liên quan đến sự tiến triển của nó. Antioxid Redox Signal. 2010;13(6):797–805. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
98. Czajkaa AS, Gnudib L, Parsadea CK, Jonesa P, Reidc F, Malika AN. Thay đổi chức năng ty thể, DNA ty thể và giảm tính linh hoạt trao đổi chất ở bệnh nhân mắc bệnh thận do tiểu đường. Y sinh học. 2015;2(6):499–512. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
99. Merecz A, Markiewicz L, Sliwinska A, Kosmalski M, Kasznicki J, Drzewoski J, Majsterek I. Phân tích tổn thương DNA do oxy hóa và quá trình sửa chữa ở bệnh nhân Ba Lan mắc bệnh đái tháo đường týp 2: Vai trò trong sinh bệnh học của bệnh thần kinh do tiểu đường. Adv Med khoa học. 2015;60(2):220–230. [Tóm tắt] [Google Scholar]
100. Kasznicki J, Kosmalski M, Sliwinska A, Mrowicka M, Stanczyk M, Majsterek I, Drzewoski J. Đánh giá các dấu hiệu stress oxy hóa trong cơ chế bệnh sinh của bệnh thần kinh tiểu đường. Dân biểu Mol Biol 2012;39(9):8669–8678. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
101. Lu J, Li X, Zhang M, Chen Z, Wang Y, Zeng C, Liu Z, Chen H. Quy định MUTYH, một loại enzyme sửa chữa DNA, trong tế bào biểu mô ống lượn gần. Tế bào Oxi Med Longev. 2014 Trên báo chí. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
102. Cai Z, Chen H, Tao J, Guo W, Liu X, Zheng B, Sun W, Wang Y. Hiệp hội đa hình gen sửa chữa cắt bỏ cơ sở với rủi ro ESRD trong dân số Trung Quốc. Tế bào Oxi Med Longev. 2012;2012:10. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
103. Cai Z, Guo W, Chen H, Tao J, Cao L, Sun W, Wang Y. Đa hình gen sửa chữa cắt bỏ cơ sở có liên quan đến chứng viêm ở bệnh nhân chạy thận nhân tạo mãn tính. Biochem Biophys Res Cộng đồng. 2012;424(3):611–615. [Tóm tắt] [Google Scholar]
104. Bernstein C, Bernstein H, Payne CM, Garewal H. Các protein có vai trò kép sửa chữa DNA/pro-apoptotic trong năm con đường sửa chữa DNA chính: bảo vệ không an toàn chống lại quá trình sinh ung thư. Đột biến Res. 2002;511(2):145–178. [Tóm tắt] [Google Scholar]
105. Ashkenazi A, Dixit VM. Kiểm soát chết theo chương trình bằng các thụ thể chết và mồi nhử. Tế bào Curr Opin Biol. 1999;11(2):255–260. [Tóm tắt] [Google Scholar]
106. Eguchi Y, Shimizu S, Tsujimoto Y. Mức ATP nội bào Xác định số phận cái chết của tế bào bằng Apoptosis hoặc Necrosis. Ung thư Res. 1997;57(10):1835–1840. [Tóm tắt] [Google Scholar]
107. Malhotra JD, Kaufman RJ. Stress lưới nội chất và stress oxy hóa: vòng luẩn quẩn hay con dao hai lưỡi? Antioxid Redox Signal. 2007;9
(12):2277–2293. [Tóm tắt] [Google Scholar]
108. Herman-Edelstein M, Thomas MC, Thallas-Bonke V, Saleem M, Cooper ME, Kantharidis P. Sự khác biệt hóa của các tế bào podocytes bất tử của con người để đáp ứng với yếu tố tăng trưởng biến đổi-beta: một mô hình cho bệnh lý tế bào gốc ở bệnh nhân tiểu đường. Bệnh tiểu đường. 2011;60(6):1779–1788. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
109. Sanchez-Nino MD, Sanz AB, Lorz C, Gnirke A, Rastaldi MP, Nair V, Egido J, Ruiz-Ortega M, Kretzler M, Ortiz A. BASP1 thúc đẩy quá trình chết theo chương trình ở bệnh thận đái tháo đường. J Am Sóc Nephrol. 2010;21(4):610–621. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
110. Kumar D, Robertson S, Bỏng KD. Bằng chứng về quá trình chết theo chương trình ở bệnh nhân đái tháo đường thận. Sinh hóa tế bào Mol. 2004;259(1-2):67–70. [Tóm tắt] [Google Scholar]
111. Kumar D, Zimpelmann J, Robertson S, Bỏng KD. Apoptosis tế bào hình ống và kẽ trong thận chuột mắc bệnh tiểu đường streptozotocin. Nephron Exp Nephrol. 2004;96(3):E77–E88. [Tóm tắt] [Google Scholar]
112. Susztak K, Ciccone E, McCue P, Sharma K, Böttinger EP. Nhiều lần truy cập trao đổi chất hội tụ trên CD36 với tư cách là chất trung gian mới của quá trình chết theo chương trình biểu mô ống trong bệnh thận đái tháo đường Xin lỗi Med. 2005;2(2):e45. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
113. Lorz C, Benito-Martín A, Boucherot A, Ucero AC, Rastaldi MP, Henger A, Armelloni S, Santamaría B, Berthier CC, Kretzler M. et al. Phối tử tử TRAIL trong bệnh thận đái tháo đường. J Am Sóc Nephrol. 2008;19(5):904–914. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
114. Sanchez-Nino MD, Benito-Martin A, Ortiz A. Các mô hình mới về sự chết tế bào trong bệnh thận đái tháo đường ở người. Thận Int. 2010;78(8):737–744. [Tóm tắt] [Google Scholar]
115. Chang YH, Lin KD, He SR, Hsieh MC, Hsiao JY, Shin SJ. Osteoprotegerin huyết thanh và yếu tố hoại tử khối u liên quan đến phối tử gây chết tế bào theo chương trình (TRAIL) tăng ở bệnh nhân đái tháo đường týp 2 có albumin niệu và osteoprotegerin huyết thanh có liên quan độc lập với mức độ nghiêm trọng của bệnh thận đái tháo đường. Sự trao đổi chất. 2011;60(8):1064–1069. [Tóm tắt] [Google Scholar]
116. Verzola D, Gandolfo MT, Ferrario F, Rastaldi MP, Villaggio B, Gianiorio F, Giannoni M, Rimoldi L, Lauria F, Miji M. et al. Apoptosis ở thận của bệnh nhân mắc bệnh thận đái tháo đường týp II. Thận Int. 2007;72(10):1262–1272. [Tóm tắt] [Google Scholar]
117. Baba K, Minatoguchi S, Sano H, Kagawa T, Murata I, Takemura G, Hirano T, Ohashi H, Takemura M, Fujiwara T, Fujiwara H. Sự tham gia của quá trình chết theo chương trình ở bệnh nhân mắc bệnh thận do tiểu đường: Một nghiên cứu về Fas hòa tan trong huyết tương mức độ và phát hiện bệnh lý. Thận học (Carlton) 2004;9(2):94–99. [Tóm tắt] [Google Scholar]
118. Kelly DJ, Stein-Oakley A, Zhang Y, Wassef L, Maguire J, Koji T, Thomson N, Wilkinson-Berka JL, Gilbert RE. Apoptosis do Fas gây ra là một đặc điểm của bệnh thận đái tháo đường tiến triển ở chuột biến đổi gen (mRen-2)27: suy giảm với phong tỏa renin-angiotensin. Thận học (Carlton) 2004;9(1):7–13. [Tóm tắt] [Google Scholar]
119. Justo P, Sanz AB, Lorz C, Egido J, Ortiz A. Hoạt động gây chết người của miền chết FADD trong tế bào biểu mô ống thận. Thận Int. 2006;69(12):2205–2211. [Tóm tắt] [Google Scholar]
120. Erkan E, De Leon M, Devarajan P. Tình trạng quá tải albumin gây ra quá trình chết theo chương trình trong các tế bào LLC-PK(1). Am J Physiol Thận Physiol. 2001;280(6):F1107–F1114. [Tóm tắt] [Google Scholar]
121. Cipollone F, Chiarelli F, Iezzi A, Fazia ML, Cuccurullo C, Pini B, De Cesare D, Torello M, Tumini S, Cuccurullo F, Mezzetti A. Mối quan hệ giữa giảm biểu hiện BCL-2 trong các tế bào đơn nhân lưu hành và bệnh thận sớm trong bệnh tiểu đường loại 1. Dược phẩm miễn dịch Int J. 2005;18(4):625–635. [Tóm tắt] [Google Scholar]
122. Ortiz A, Ziyadeh FN, Neilson EG. Biểu hiện của các gen điều hòa quá trình chết theo chương trình trong các tế bào biểu mô ống lượn gần ở thận tiếp xúc với glucose xung quanh cao và ở bệnh nhân tiểu đường thận. J Điều tra Medi. 1997;45(2):50–56. [Tóm tắt] [Google Scholar]
123. Liu F, Brezniceanu ML, Wei CC, Chenier I, Sachetelli S, Zhang SL, Filep JG, Ingelfinger JR, Chan JS. Sự biểu hiện quá mức của angiotensinogen làm tăng quá trình chết theo chương trình ở ống thận trong bệnh tiểu đường. J Am Sóc Nephrol. 2008;19(2):269–280. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
124. Qiu LQ, Sinniah R, I-Hong Hsu S. Điều hòa giảm Bcl-2 bởi podocytes có liên quan đến tổn thương cầu thận tiến triển và các chỉ số lâm sàng về tiên lượng thận kém trong bệnh thận IgA ở người. J Am Sóc Nephrol. 2004;15(1):79–90. [Tóm tắt] [Google Scholar]
125. Goumenos DS, Tsamandas AC, Kalliakmani P, Tsakas S, Sotsiou F, Bonikos DS, Vlachojannis JG. Sự biểu hiện của các protein liên quan đến quá trình chết theo chương trình bcl-2 và bax cùng với yếu tố tăng trưởng biến đổi (TGF-beta1) ở thận của bệnh nhân mắc bệnh tiểu cầu thận. Ren thất bại. 2004;26(4):361–367. [Tóm tắt] [Google Scholar]
126. Lau GJ, Godin N, Maachi H, Lo CS, Wu SJ, Zhu JX, Brezniceanu ML, Chenier I, Fragasso-Marquis J, Lattouf JB. et al. Yếu tố biến đổi Bcl-2 gây ra quá trình chết theo chương trình của tế bào ống lượn gần ở chuột mắc bệnh tiểu đường. Bệnh tiểu đường. 2012;61(2):474–484. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
127. Gerecova G, Kopanicova J, Jaka P, Behalova L, Juhasova B, Bhatia-Kissova I, Forte M, Polcic P, Mentel M. Các protein chỉ có BH3 Noxa, Bik, Bmf và Bid kích hoạt Bax và Bak một cách gián tiếp khi nghiên cứu trong mô hình nấm men. Nấm men FEMS Res. 2013;13(8):747–754. [Tóm tắt] [Google Scholar]
128. Rane MJ, Song Y, Jin S, Barati MT, Wu R, Kausar H, Tan Y, Wang Y, Zhou G, Klein JB. et al. Tương tác giữa các con đường Akt và p38 MAPK trong việc điều hòa quá trình chết theo chương trình của tế bào ống thận liên quan đến bệnh thận do tiểu đường. Am J Physiol Thận Physiol. 2010;298(1):F49–F61. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
129. Wagener FA, Dekker D, Berden JH, Scharstuhl A, van der Vlag J. Vai trò của các loại oxy phản ứng trong quá trình chết theo chương trình của thận đái tháo đường. Sự chết tế bào. 2009;14(12):1451–1458. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
130. Song P, Yang S, Xiao L, Xu X, Tang C, Yang Y, Ma M, Zhu J, Liu F, Sun L. PKCdelta thúc đẩy tổn thương oxy hóa ở ống thận do glucose cao thông qua việc điều chỉnh kích hoạt và chuyển vị của p66Shc. Tế bào Oxi Med Longev. 2014;2014:746531. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar] Đã rút lại
131. Sun L, Xiao L, Nie J, Liu FY, Ling GH, Zhu XJ, Tang WB, Chen WC, Xia YC, Zhan M. et al. p66Shc làm trung gian cho tổn thương ống thận do Stress oxy hóa do glucose và angiotensin II gây ra thông qua con đường apoptotic phụ thuộc vào ty thể. Am J Physiol Thận Physiol. 2010;299(5):F1014–F1025. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
132. Verzola D, Ratto E, Villaggio B, Parodi EL, Pontremoli R, Garibotto G, Viazzi F. Axit uric thúc đẩy quá trình chết theo chương trình trong các tế bào ống lượn gần của con người do stress oxy hóa và kích hoạt NADPH oxyase NOX 4. Plos One. 2014;9(12):e115210. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
133. Susnow N, Zeng L, Margineantu D, Hockenbery DM. Protein gia đình Bcl-2 như chất điều hòa stress oxy hóa. Sinh học ung thư Semin. 2009;19(1):42–49. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
134. D’Alessio M, De Nicola M, Coppola S, Gualandi G, Pugliese L, Cerella C, Cristofanon S, Civitareale P, Ciriolo MR, Bergamaschi A. et al. Giảm thiểu quá trình oxy hóa Bax thúc đẩy sự chuyển vị của nó sang ty thể độc lập với quá trình tự hủy. Faseb J. 2005;19(11):1504–1506. [Tóm tắt] [Google Scholar]
135. Karch J, Molkentin JD. Cái chết của tế bào hoại tử được điều hòa: mặt tích cực thụ động của Bax và Bak. Thông tư Res. 2015;116(11):1800–1809. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
136. Whelan RS, Konstantinidis K, Wei AC, Chen Y, Reyna DE, Jha S, Yang Y, Calvert JW, Lindsten T, Thompson CB. et al. Bax điều chỉnh hoại tử nguyên phát thông qua động lực của ty thể. Proc Natl Acad Sci U S A. 2012;109(17):6566–6571. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
137. Dewson G, Kluck RM. Các cơ chế mà Bak và Bax thấm ty thể trong quá trình tự hủy. Khoa học tế bào J. 2009;122(16):2801–2808. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
138. Lin SH, Perera MN, Nguyen T, Datskovskiy D, Miles M, Colombini M. Bax tạo thành hai loại kênh, một trong số đó là cổng điện áp. Biophys J. 2011;101(9):2163–2169. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
139. Chen Y, Gui D, Chen J, He D, Luo Y, Wang N. Điều chỉnh giảm con đường PERK-ATF4-CHOP bằng Astragaloside IV có liên quan đến việc ức chế quá trình chết theo chương trình của tế bào podocyte gây Stress cho mạng lưới nội chất ở chuột mắc bệnh tiểu đường. Hóa sinh vật lý tế bào. 2014;33(6):1975–1987. [Tóm tắt] [Google Scholar]
140. Baban B, Liu JY, Mozaffari MS. Phản ứng Stress của lưới nội chất và các cytokine gây viêm trong bệnh thận đái tháo đường týp 2: Vai trò của indoleamine 2,3-dioxygenase và cái chết được lập trình-1. Exp Mol Pathol. 2013;94(2):343–351. [Tóm tắt] [Google Scholar]
141. Brosius FC, Kaufman RJ. ER có bị Stress trong bệnh thận do tiểu đường không? J Am Sóc Nephrol. 2008;19(11):2040–2042. [Tóm tắt] [Google Scholar]
142. Forbes JM, Coughlan MT, Cooper ME. Stress oxy hóa là thủ phạm chính gây ra bệnh thận ở bệnh tiểu đường. Bệnh tiểu đường. 2008;57(6):1446–1454. [Tóm tắt] [Google Scholar]
143. Lee AH, Iwakoshi NN, Glimcher LH. XBP-1 điều chỉnh một tập hợp con của các gen chaperone cư trú trong mạng lưới nội chất trong phản ứng protein mở ra. Sinh học tế bào Mol. 2003;23(21):7448–7459. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
144. Chen Y, Brandizzi F. IRE1: Cảm biến Stress ER và người thực thi số phận tế bào. Xu hướng Cell Biol. 2013;23(11):547–555. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
145. Fonseca SG, Gromada J, Urano F. Stress lưới nội chất và chết tế bào beta tuyến tụy. Xu hướng Endocrinol Metab. 2011;22(7):266–274. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
146. Laybutt DR, Preston AM, Akerfeldt MC, Kench JG, Busch AK, Biankin AV, Biden TJ. Stress mạng lưới nội chất góp phần gây ra quá trình chết theo chương trình của tế bào beta ở bệnh tiểu đường loại 2. bệnh tiểu đường. 2007;50(4):752–763. [Tóm tắt] [Google Scholar]
147. Lindenmeyer MT, Rastaldi MP, Ikehata M, Neusser MA, Kretzler M, Cohen CD, Schlöndorff D. Protein niệu và tăng đường huyết gây ra Stress lưới nội chất. J Am Sóc Nephrol. 2008;19(11):2225–2236. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
148. Trang A, Forbes JM. Stress ở thận là con đường dẫn đến thoái hóa: Stress lưới nội chất có phải là chất trung gian gây bệnh của bệnh thận đái tháo đường? Nội tiết J. 2014;222(3):R97–R111. [Tóm tắt] [Google Scholar]
149. Inagi R. Stress lưới nội chất là một yếu tố tiến triển của chấn thương thận. Dược phẩm Curr Opin. 2010;10(2):156–165. [Tóm tắt] [Google Scholar]
150. Brezniceanu ML, Lau CJ, Godin N, Chenier I, Duclos A, Ethier J, Filep JG, Ingelfinger JR, Zhang SL, Chan JS. Các loại oxy phản ứng thúc đẩy biểu hiện caspase-12 và quá trình chết theo chương trình ở ống thận trong bệnh thận đái tháo đường. J Am Sóc Nephrol. 2010;21(6):943–954. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
151. Cheema MU, Damkier HH, Nielsen J, Poulsen ET, Enghild JJ, Fenton RA, Praetorius J. Các ống thận xa bị thiếu hụt trong quá trình hình thành aggresome và autophagy khi sử dụng aldosterone. Plos One. 2014;9(7):e101258. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
152. Feissner RF, Skalska J, Gaum WE, Sheu SS. Tín hiệu nhiễu xuyên âm giữa ty thể Ca(2+) và ROS. Front Biosci (Landmark Ed) 2009;14:1197–1218. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
153. Grimm S. Giao diện ER–ty thể: Mạng xã hội của sự chết tế bào. Biochim Biophys Acta. 2012;1823(2):327–334. [Tóm tắt] [Google Scholar]
154. Brookes PS, Yoon Y, Robotham JL, Anders MW, Sheu SS. Canxi, ATP và ROS: một tam giác yêu-ghét của ty thể. Am J Physiol Tế bào Physiol. 2004;287(4):C817–C833. [Tóm tắt] [Google Scholar]
155. Pospisilik JA, Knauf C, Joza N, Benit P, Orthofer M, Cani PD, Ebersberger I, Nakashima T, Sarao R, Neely G. et al. Mục tiêu xóa AIF làm giảm quá trình phosphoryl oxy hóa ty thể và bảo vệ khỏi bệnh béo phì và tiểu đường. Tế bào. 2007;131(3):476–491. [Tóm tắt] [Google Scholar]
156. Sano R, Reed JC. Cơ chế chết tế bào do Stress ER. Biochim Biophys Acta. 2013;1833(12):3460–3470. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
157. Các protein Wang X, Olberding KE, White C, Li C. Bcl-2 điều chỉnh tính thấm của màng ER đối với các protein trong lòng mạch trong quá trình chết theo chương trình do Stress của ER. Tế bào chết khác nhau. 2011;18(1):38–47. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
158. Zong WX, Li C, Hatzivassiliou G, Lindsten T, Yu QC, Yuan J, Thompson CB. Bax và Bak có thể định vị trong mạng lưới nội chất để bắt đầu quá trình chết theo chương trình. Sinh học tế bào J. 2003;162(1):59–69. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
159. Kennedy D, Mnich K, Samali A. Điều kiện tiên quyết sốc nhiệt bảo vệ chống lại quá trình chết theo chương trình do Stress ER gây ra thông qua quy định của BIM protein chỉ có BH3. THÁNG 2 Mở Tiểu sử. 2014;4:813–821. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
160. Morishima N, Nakanishi K, Tsuchiya K, Shibata T, Seiwa E. Chuyển Bim sang mạng lưới nội chất (ER) làm trung gian truyền tín hiệu Stress ER để kích hoạt caspase-12 trong quá trình chết theo chương trình do Stress ER gây ra. Hóa chất sinh học J. 2004;279(48):50375–50381. [Tóm tắt] [Google Scholar]
161. Lin ML, Chen SS, Huang RY, Lu YC, Liao YR, Reddy MV, Lee CC, Wu TS. Ức chế tín hiệu PI3K/Akt bằng TSWU-CD4 tương tự bichalcone tổng hợp gây ra stress ER và quá trình chết theo chương trình qua trung gian Bax/Bak của các tế bào ung thư. Sự chết tế bào. 2014;19(11):1637–1653. [Tóm tắt] [Google Scholar]
162. Matsuzaki S, Hiratsuka T, Kuwahara R, Katayama T, Tohyama M. Caspase-4 bị calpain cắt một phần do suy giảm cân bằng nội môi Ca2+ dưới áp lực của ER. Công ty dược phẩm thần kinh 2010;56(2):352–356. [Tóm tắt] [Google Scholar]
163. Sansanwal P, Kambham N, Sarwal MM. Caspase-4 có thể đóng một vai trò trong việc mất ống lượn gần và tổn thương thận trong bệnh cystinosis thận. Pediatr Nephrol. 2010;25(1):105–109. [Tóm tắt] [Google Scholar]
164. Sanchez-Nino MD, Sanz AB, Ortiz A. Caspase-12 và bệnh thận đái tháo đường: Từ chuột đến con người? J Am Sóc Nephrol. 2010;21(6):886–888. [Tóm tắt] [Google Scholar]
165. Deegan S, Saveljeva S, Logue SE, Pakos-Zebrucka K, Gupta S, Vandenabeele P, Bertrand MJ, Samali A. Sự thiếu hụt trong con đường apoptotic của ty thể cho thấy tiềm năng độc hại của bệnh autophagy trong điều kiện Stress ER. Autophagy. 2014;10(11):1921–1936. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
166. Ueda M, Li S, Itoh M, Hayakawa-Yano Y, Wang MX, Hayakawa M, Hasebe-Matsubara R, Ohta K, Ohta E, Mizuno A. et al. Sự mở rộng polyglutamine làm xáo trộn sự hình thành mạng lưới nội chất, dẫn đến kích hoạt caspase-7 thông qua Bax. Biochem Biophys Res Cộng đồng. 2014;443(4):1232–1238. [Tóm tắt] [Google Scholar]
167. Gill MB, Bockhorst K, Narayana P, Perez-Polo JR. Vận chuyển bax sau khi thiếu oxy-thiếu máu cục bộ ở trẻ sơ sinh: hiệu ứng tăng oxy. J thần kinh Res. 2008;86(16):3584–3604. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
168. Bonneau B, Prudent J, Popgeorgiev N, Gillet G. Vai trò không gây chết tế bào theo chương trình của họ Bcl-2: liên kết canxi. Biochim Biophys Acta. 2013;1833(7):1755–1765. [Tóm tắt] [Google Scholar]
169. VCK nhỏ, Bennett NC, Roy S, Gabrielli BG, Johnson DW, Gobe GC. Stress oxy hóa và lão hóa tế bào kết hợp với nhau gây ra rối loạn chức năng và mất tế bào biểu mô ống thận tối đa trong mô hình bệnh thận in vitro. Nephron Exp Nephrol. 2012;122(3-4):123–130. [Tóm tắt] [Google Scholar]
170. Frippiat C, Chen QM, Zdanov S, Magalhaes JP, Remacle J, Toussaint O. Stress do H2O2 gây độc tế bào kích hoạt giải phóng yếu tố tăng trưởng biến đổi-beta1, yếu tố này tạo ra các dấu ấn sinh học của sự lão hóa tế bào của nguyên bào sợi lưỡng bội ở người. Hóa chất sinh học J. 2001;276(4):2531–2537. [Tóm tắt] [Google Scholar]
171. de Haan JB, Bladier C, Lotfi-Miri M, Taylor J, Hutchinson P, Crack PJ, Hertzog P, Kola I. Các nguyên bào sợi có nguồn gốc từ chuột bị loại bỏ Gpx1 hiển thị các đặc điểm giống như tế bào lão hóa và dễ bị chết tế bào qua trung gian H2O2. gốc tự do
Thuốc sinh học. 2004;36(1):53–64. [Tóm tắt] [Google Scholar]
172. Zhu K, Kakehi T, Matsumoto M, Iwata K, Ibi M, Ohshima Y, Zhang J, Liu J, Wen X, Taye A. et al. NADPH oxyase NOX1 có liên quan đến việc kích hoạt protein kinase C và lão hóa sớm ở bệnh nhân đái tháo đường giai đoạn đầu. Radic Biol Med miễn phí. 2015;83:21–30. [Tóm tắt] [Google Scholar]
173. Verzola D, Gandolfo MT, Gaetani G, Ferraris A, Mangerini R, Ferrario F, Villaggio B, Gianiorio F, Tosetti F, Weiss U. et al. Lão hóa nhanh ở thận của bệnh nhân mắc bệnh thận đái tháo đường týp 2. Am J Physiol Thận Physiol. 2008;295(5):F1563–F1573. [Tóm tắt] [Google Scholar]
174. Lee HC, Yin PH, Lu CY, Chi CW, Wei YH. Tăng ty thể và DNA ty thể để đáp ứng với stress oxy hóa trong tế bào người. Biochem J. 2000;348(Pt 2):425–432. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
175. Malik AN, Shahni R, Iqbal MM. Tăng DNA ty thể trong máu ngoại vi ở bệnh nhân tiểu đường loại 2 mắc bệnh thận. Phòng khám bệnh tiểu đường Res. 2009;86(2):E22–E24. [Tóm tắt] [Google Scholar]
176. Nakamura T, Ushiyama C, Suzuki S, Hara M, Shimada N, Ebihara I, Koide H. Bài tiết tế bào podocytes qua nước tiểu ở bệnh nhân mắc bệnh thận đái tháo đường. Cấy ghép quay số Nephrol. 2000;15(9):1379–1383. [Tóm tắt] [Google Scholar]
177. Soltoff SP. ATP và điều hòa chức năng tế bào thận. Annu Rev Physiol. 1986;48:9–31. [Tóm tắt] [Google Scholar]
178. AP Halestrap. Lỗ chân lông chuyển tiếp tính thấm của ty thể là gì? Tế bào J Mol Cardiol. 2009;46(6):821–831. [Tóm tắt] [Google Scholar]
179. Halestrap AP, Pasdois P. Vai trò của lỗ chân lông chuyển tiếp tính thấm của ty thể trong bệnh tim. Biochim Biophys Acta. 2009;1787(11):1402–1415. [Tóm tắt] [Google Scholar]
180. Bernardi P. Lỗ chân lông chuyển tiếp tính thấm của ty thể: một bí ẩn đã được giải quyết? Vật lý phía trước. 2013;4:95. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
181. Karch J, Molkentin JD. Xác định các thành phần của lỗ chân lông chuyển tiếp tính thấm ty thể khó nắm bắt. Proc Natl Acad Sci U S A. 2014;111(29):10396–10397. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
182. Takebayashi S, Kaneda K. Rối loạn ty thể: có thể là nguyên nhân khởi đầu của microalbumin niệu trong NIDDM. Biến chứng tiểu đường J. 1991;5(2-3):104–106. [Tóm tắt] [Google Scholar]
183. Kaneda K, Iwao J, Sakata N, Takebayashi S. Mối tương quan giữa sự mở rộng ty thể ở ống lượn gần thận và albumin niệu vi lượng ở chuột mắc bệnh tiểu đường do streptozotocin sớm. Acta Pathol JPN. 1992;42(12):855–860. [Tóm tắt] [Google Scholar]
184. Yu T, Robotham JL, Yoon Y. Tăng sản xuất các loại oxy phản ứng trong điều kiện tăng đường huyết đòi hỏi sự thay đổi năng động của hình thái ty thể. Proc Natl Acad Sci U S A. 2006;103(8):2653–2658. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
185. Zoratti M, Szabo I. Quá trình chuyển đổi tính thấm của ty thể. Biochim Biophys Acta. 1995;1241(2):139–176. [Tóm tắt] [Google Scholar]
186. Crompton M. Lỗ chuyển tiếp tính thấm của ty thể và vai trò của nó trong quá trình chết tế bào. Biochem J. 1999;341(Pt 2):233–249. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
187. AP Halestrap. Tổn thương canxi, ty thể và tái tưới máu: một con đường dẫn đến cái chết. Biochem Soc Trans. 2006;34(Pt 2):232–237. [Tóm tắt] [Google Scholar]
188. Armstrong JS. Vai trò của quá trình chuyển đổi tính thấm của ty thể trong quá trình chết tế bào. Ti thể. 2006;6(5):225–234. [Tóm tắt] [Google Scholar]
189. Zorov DB, Juhaszova M, Yaniv Y, Nuss HB, Wang S, Sollott SJ. Quy định và dược lý của lỗ chân lông chuyển tiếp tính thấm của ty thể. Tim mạch Res. 2009;83(2):213–225. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
190. Baines CP. Thành phần phân tử của lỗ chân lông chuyển tiếp tính thấm của ty thể. Tế bào J Mol Cardiol. 2009;46(6):850–857. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
191. Baines CP, Kaiser RA, Sheiko T, Craigen WJ, Molkentin JD. Các kênh anion phụ thuộc vào điện áp có thể phân phối được cho cái chết của tế bào phụ thuộc vào ty thể. Sinh học tế bào tự nhiên. 2007;9(5):550–555. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
192. Kokoszka JE, Waymire KG, Levy SE, Sligh JE, Cai J, Jones DP, MacGregor GR, Wallace DC. Bộ chuyển mã ADP/ATP không cần thiết cho lỗ chân lông chuyển tiếp tính thấm của ty thể. Tự nhiên. 2004;427(6973):461–465. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
193. Krauskopf A, Eriksson O, Craigen WJ, Forte MA, Bernardi P. Thuộc tính của quá trình chuyển đổi tính thấm trong VDAC1(-/-) ty thể. Biochim Biophys Acta. 2006;1757(5-6):590–595. [Tóm tắt] [Google Scholar]
194. Schinzel AC, Takeuchi O, Huang Z, Fisher JK, Zhou Z, Rubens J, Hetz C, Danial NN, Moskowitz MA, Korsmeyer SJ. Cyclophilin D là một thành phần của quá trình chuyển đổi tính thấm của ty thể và làm trung gian cho sự chết tế bào thần kinh sau thiếu máu não cục bộ. Proc Natl Acad Sci U S A. 2005;102(34):12005–12010. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
195. Woodfield K, Ruck A, Brdiczka D, Halestrap AP. trực tiếp Việc chứng minh sự tương tác cụ thể giữa cyclophilin-D và adenine nucleotide translocase khẳng định vai trò của chúng trong quá trình chuyển đổi tính thấm của ty thể. Biochem J. 1998;336(Pt 2):287–290. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
196. Baines CP, Kaiser RA, Purcell NH, Blair NS, Osinska H, Hambleton MA, Brunskill EW, Sayen MR, Gottlieb RA, Dorn GW. et al. Mất cyclophilin D cho thấy một vai trò quan trọng đối với quá trình chuyển đổi tính thấm của ty thể trong quá trình chết tế bào. Thiên nhiên. 2005;434(7033):658–662. [Tóm tắt] [Google Scholar]
197. Nakagawa T, Shimizu S, Watanabe T, Yamaguchi O, Otsu K, Yamagata H, Inohara H, Kubo T, Tsujimoto Y. Quá trình chuyển đổi tính thấm ty thể phụ thuộc vào Cyclophilin D điều chỉnh một số tế bào hoại tử nhưng không gây chết tế bào apoptotic. Tự nhiên. 2005;434(7033):652–658. [Tóm tắt] [Google Scholar]
198. Giorgio V, von Stockum S, Antoniel M, Fabbro A, Fogolari F, Forte M, Glick GD, Petronilli V, Zoratti M, Szabo I. et al. Các dimer của ATP synthase ty thể tạo thành lỗ chuyển tiếp thấm. Proc Natl Acad Sci U S A. 2013;110(15):5887–5892. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
199. Alavian KN, Beutner G, Lazrove E, Sacchetti S, Park HA, Licznerski P, Li H, Nabili P, Hockensmith K, Graham M. et al. Một kênh tách rời trong vòng tiểu đơn vị c của F1FO ATP synthase là lỗ chuyển tiếp tính thấm của ty thể. Proc Natl Acad Sci U S A. 2014;111(29):10580–10585. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
200. Takeyama N, Miki S, Hirakawa A, Tanaka T. Vai trò của quá trình chuyển đổi tính thấm của ty thể và giải phóng cytochrom C trong quá trình chết theo chương trình do hydro peroxide gây ra. Exp di động Res. 2002;274(1):16–24. [Tóm tắt] [Google Scholar]
201. Batandier C, Leverve X, Fontaine E. Việc mở lỗ chân lông chuyển tiếp tính thấm của ty thể gây ra sự sản xuất các loại oxy phản ứng ở cấp độ phức hợp chuỗi hô hấp I. J Biol Chem. 2004;279(17):17197–17204. [Tóm tắt] [Google Scholar]
202. Scorrano L, Ashiya M, Buttle K, Weiler S, Oakes SA, Mannella CA, Korsmeyer SJ. Một con đường riêng biệt điều chỉnh lại mào ty thể và huy động cytochrom c trong quá trình chết theo chương trình. Tế bào Dev. 2002;2(1):55–67. [Tóm tắt] [Google Scholar]
203. Boveris A, Oshino N, Chance B. Quá trình sản xuất hydro peroxide của tế bào. Biochem J. 1972;128(3):617–630. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
204. Turren JF. Sự hình thành ty thể của các loài oxy phản ứng. J Vật lý. 2003;552(Pt 2):335–344. [Tóm tắt] [Google Scholar]
205. Zorov DB, Juhaszova M, Sollott SJ. Bản phát hành ROS do ty thể gây ra ROS: một bản cập nhật và đánh giá. Biochim Biophys Acta. 2006;1757(5-6):509–517. [Tóm tắt] [Google Scholar]
206. Whelan RS, Konstantinidis K, Wei AC, Chen Y, Reyna DE, Jha S, Yang Y, Calvert JW, Lindsten T, Thompson CB. et al. Bax điều chỉnh hoại tử nguyên phát thông qua động lực của ty thể. Proc Natl Acad Sci U S A. 2012;109(17):6566–6571. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
207. Devalaraja-Narahimha K, Diener AM, Padanilam BJ. Cắt bỏ gen Cyclophilin D bảo vệ chuột khỏi tổn thương thận do thiếu máu cục bộ. Am J Physiol Thận Physiol. 2009;297(3):F749–F759. [Tóm tắt] [Google Scholar]
208. Gooch JL, Barnes JL, Garcia S, Abboud HE. Calcineurin được kích hoạt trong bệnh tiểu đường và cần thiết cho sự phì đại cầu thận và tích lũy ECM. Am J Physiol Thận Physiol. 2003;284(1):F144–F154. [Tóm tắt] [Google Scholar]
209. Oliveira PJ, Esteves TC, Seica R, Moreno AJ, Santos MS. Quá trình chuyển đổi tính thấm của ty thể phụ thuộc vào canxi được tăng cường ở thận của chuột mắc bệnh tiểu đường Goto-Kakizaki. Tiểu đường Metab Res Rev. 2004;20(2):131–136. [Tóm tắt] [Google Scholar]
210. Smith RA, CM chân thành, Gane AM, Murphy MP. Cung cấp các phân tử hoạt tính sinh học cho ty thể in vivo. Proc Natl Acad Sci U S A. 2003;100(9):5407–5412. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
211. Mukhopadhyay P, Horvath B, Zsengeller Z, Zielonka J, Tanchian G, Holovac E, Kechrid M, Patel V, Stillman IE, Parikh SM. et al. Các chất chống oxy hóa nhắm mục tiêu vào ty thể đại diện cho một phương pháp đầy hứa hẹn để ngăn ngừa bệnh thận do cisplatin gây ra. Radic Biol Med miễn phí. 2012;52(2):497–506. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
212. Tabara LC, Poveda J, Martin-Clear C, Selgas R, Ortiz A, Sanchez-Nino MD. Các liệu pháp nhắm mục tiêu ty thể cho chấn thương thận cấp tính. Chuyên gia Rev Mol Med. 2014;16:e13. [Tóm tắt] [Google Scholar]
213. Subramanian S, Kalyanaraman B, Migrino RQ. Các chất chống oxy hóa nhắm mục tiêu ty thể để điều trị các bệnh tim mạch. Gần đây Pat Cardiovasc Thuốc Discov. 2010;5(1):54–65. [Tóm tắt] [Google Scholar]
214. Chacko BK, Reily C, Srivastava A, Johnson MS, Ye Y, Ulasova E, Agarwal A, Zinn KR, Murphy MP, Kalyanaraman B, Darley-Usmar V. Phòng ngừa bệnh thận do tiểu đường ở Ins2(+/)(-) (AkitaJ) bằng liệu pháp nhắm mục tiêu vào ty thể MitoQ. Biochem J. 2010;432(1):9–19. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
215. Bolisetty S, Traylor A, Zarjou A, Johnson MS, Benavides GA, Ricart K, Boddu R, Moore RD, Landar A, Barnes S. et al. Heme oxyase-1 nhắm mục tiêu ty thể làm giảm căng thẳng oxy hóa trong các tế bào biểu mô thận. Am J Physiol Thận Physiol. 2013;305(3):F255–F264. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
216. Nakamura Y, Feng Q, Kumagai T, Torikai K, Ohigashi H, Osawa T, Noguchi N, Niki E, Uchida K. Ebselen, một hợp chất selen hữu cơ bắt chước glutathione peroxidase, như một chất chống oxy hóa đa chức năng. Hàm ý gây ung thư liên quan đến viêm. Hóa chất sinh học J. 2002;277(4):2687–2694. [Tóm tắt] [Google Scholar]
217. Tan SM, Sharma A, Yuen DY, Stefanovic N, Krippner G, Mugesh G, Chai Z, de Haan JB. Selenenyl amide đã được sửa đổi, M-hydroxy ebselen, làm giảm bệnh thận do tiểu đường và chứng xơ vữa động mạch liên quan đến bệnh tiểu đường ở chuột bị loại bỏ kép ApoE/GPx1. Plos One. 2013;8(7):e69193. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
218. Filipovska A, Kelso GF, Brown SE, Beer SM, Smith RA, Murphy MP. Tổng hợp và mô tả đặc tính của một chất bắt chước peroxidase liên hợp triphenylphosphonium. Hiểu biết sâu sắc về sự tương tác của ebselen với ty thể. Hóa chất sinh học J. 2005;280(25):24113–24126. [Tóm tắt] [Google Scholar]
219. Szeto HH, Liu S, Soong Y, Wu D, Darrah SF, Cheng FY, Zhao Z, Ganger M, Tow CY, Seshan SV. Peptide nhắm mục tiêu ty thể tăng tốc phục hồi ATP và giảm tổn thương thận do thiếu máu cục bộ. J Am Sóc Nephrol. 2011;22(6):1041–1052. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
220. Chakrabarti AK, Feeney K, Abueg C, Brown DA, Czyz E, Tendera M, Janosi A, Giugliano RP, Kloner RA, Weaver WD. et al. Cơ sở lý luận và thiết kế của nghiên cứu EMBRACE STEMI: một thử nghiệm giai đoạn 2a, ngẫu nhiên, mù đôi, có đối chứng với giả dược để đánh giá tính an toàn, khả năng dung nạp và hiệu quả của Bendavia đường tĩnh mạch đối với tổn thương do tái tưới máu ở những bệnh nhân được điều trị bằng liệu pháp tiêu chuẩn bao gồm can thiệp mạch vành qua da ban đầu và đặt stent đối với nhồi máu cơ tim có đoạn ST chênh lên. Am Heart J. 2013;165(4):509–514. [Tóm tắt] [Google Scholar]
221. Javadov S, Karmazyn M, Escobales N. Mở lỗ chân lông chuyển tiếp tính thấm của ty thể như một mục tiêu điều trị đầy hứa hẹn trong các bệnh tim mạch. J Pharmacol Exp Ther. 2009;330(3):670–678. [Tóm tắt] [Google Scholar]
222. Halestrap AP, Davidson AM. cyclosporin ức chế sưng biên độ lớn do Ca2(+) gây ra ở gan và tim bởi cyclosporin có thể là do chất ức chế liên kết với peptidyl-prolyl cis-trans isomerase của ma trận ty thể và ngăn không cho nó tương tác với adenine nucleotide translocase. Biochem J. 1990;268(1):153–160. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
223. Tanveer A, Virji S, Andreeva L, Totty NF, Hsuan JJ, Ward JM, Crompton M. Sự tham gia của cyclophilin D trong việc kích hoạt lỗ ty thể do Ca2+ và stress oxy hóa. Hóa chất Eur J. 1996;238(1):166–172. [Tóm tắt] [Google Scholar]
224. Piot C, Croisille P, Staat P, Thibault H, Rioufol G, Mewton N, Elbelghiti R, Cung TT, Bonnefoy E, Angoulvant D. et al. Tác dụng của cyclosporine đối với tổn thương tái tưới máu trong nhồi máu cơ tim cấp tính. N Engl J Med. 2008;359(5):473–481. [Tóm tắt] [Google Scholar]
225. Li C, Lim SW, Sun BK, Yang CW. Nhiễm độc thận mãn tính do cyclosporine: những hiểu biết mới và chiến lược phòng ngừa. Yonsei Med J. 2004;45(6):1004–1016. [Tóm tắt] [Google Scholar]
226. Ptak RG, Gallay PA, Jochmans D, Halestrap AP, Ruegg UT, Pallansch LA, Bobardt MD, de Bethune MP, Neyts J, De Clercq E. et al. Ức chế sự nhân lên của virus gây suy giảm miễn dịch ở người loại 1 trong tế bào người bằng Debio-025, một tác nhân liên kết cyclophilin mới. Đại lý Antimicrob Hóa chất. 2008;52(4):1302–1317. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
227. Tiepolo T, Angelin A, Palma E, Sabatelli P, Merlini L, Nicolosi L, Finetti F, Braghetta P, Vuagniaux G, Dumont JM. et al. Chất ức chế cyclophilin Debio 025 bình thường hóa chức năng ty thể, quá trình chết theo chương trình của cơ và khiếm khuyết siêu tế bào ở chuột bệnh cơ Col6a1(-/-). Dược phẩm Br J. 2009;157(6):1045–1052. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
228. Angelin A, Tiepolo T, Sabatelli P, Grumati P, Bergamin N, Golfieri C, Mattioli E, Gualandi F, Ferlini A, Merlini L. et al. Rối loạn chức năng ty thể trong cơ chế bệnh sinh của chứng loạn dưỡng cơ bẩm sinh Ullrich và liệu pháp triển vọng với cyclosporin. Proc Natl Acad Sci U S A. 2007;104(3):991–996. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
229. Tiepolo T, Angelin A, Palma E, Sabatelli P, Merlini L, Nicolosi L, Finetti F, Braghetta P, Vuagniaux G, Dumont JM. et al. Chất ức chế cyclophilin Debio 025 bình thường hóa chức năng ty thể, quá trình chết theo chương trình của cơ và khiếm khuyết siêu tế bào ở chuột Col6a1-/- bệnh cơ. Dược phẩm Br J. 2009;157(6):1045–1052. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
230. Quarato G, D’Aprile A, Gavillet B, Vuagniaux G, Moradpour D, Capitanio N, Piccoli C. Chất ức chế cyclophilin alisporivir ngăn ngừa rối loạn chức năng ty lạp thể do virus viêm gan C. khoa gan. 2012;55(5):1333–1343. [Tóm tắt] [Google Scholar]
231. Liang HL, Sedlic F, Bosnjak Z, Nilakantan V. SOD1 và MitoTEMPO ngăn chặn một phần quá trình chuyển đổi tính thấm của ty thể mở lỗ chân lông, hoại tử và quá trình chết theo chương trình của ty thể sau khi hồi phục do cạn kiệt ATP. Radic Biol Med miễn phí. 2010;49(10):1550–1560. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
232. Wang Z, Bao H, Ge Y, Zhuang S, Peng A, Gong R. Mục tiêu dược lý của GSK3beta mang lại sự bảo vệ chống lại bệnh lý tế bào mỡ và protein niệu bằng cách giải mẫn cảm quá trình chuyển đổi tính thấm của ty thể. Dược phẩm Br J. 2015;172(3):895–909. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
233. de Zeeuw D, Audhya P, Bakris GL, Chin M, Christ-Schmidt H, Goldsberry A, Houser M, Krauth M, Lambers Heerspink HJ, McMurray JJ. et al. Bardoxolone methyl trong bệnh tiểu đường loại 2 và bệnh thận mãn tính giai đoạn 4. N Engl J Med. 2013;369(26):2492–2503. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
234. Tan SM, Sharma A, Stefanovic N, Yuen DY, Karagiannis TC, Meyer C, Ward KW, Cooper ME, de Haan JB. Dẫn xuất của bardoxolone methyl, dh404, theo cách phụ thuộc vào liều lượng nghịch đảo làm giảm xơ vữa động mạch liên quan đến bệnh tiểu đường và cải thiện bệnh thận do tiểu đường. Bệnh tiểu đường. 2014;63(9):3091–3103. [Tóm tắt] [Google Scholar]
235. Trujillo J, Chirino YI, Molina-Jijon E, Anderica-Romero AC, Tapia E, Pedraza-Chaverri J. Tác dụng bảo vệ của chất chống oxy hóa curcumin: Những phát hiện gần đây. Redox Biol. 2013;1:448–456. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
236. Jiang T, Huang Z, Lin Y, Zhang Z, Fang D, Zhang DD. Vai trò bảo vệ của Nrf2 trong bệnh thận đái tháo đường do streptozotocin gây ra. Bệnh tiểu đường. 2010;59(4):850–860. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
237. Xu Y, Nie L, Yin YG, Tang JL, Zhou JY, Li DD, Zhou SW. Resveratrol bảo vệ chống lại tổn thương oxy hóa do tăng đường huyết gây ra cho ty thể bằng cách kích hoạt SIRT1 trong các tế bào trung mô của chuột. Toxicol Appl Pharmacol. 2012;259(3):395–401. [Tóm tắt] [Google Scholar]
238. Alhaider AA, Korashy HM, Sayed-Ahmed MM, Mobark M, Kfoury H, Mansour MA. Metformin làm giảm bệnh thận đái tháo đường do streptozotocin gây ra ở chuột thông qua điều biến biểu hiện gen gây stress oxy hóa. Tương tác Chem Biol. 2011;192(3):233–242. [Tóm tắt] [Google Scholar]
239. Pal PB, Sinha K, Sil PC. Mangiferin làm suy giảm bệnh thận đái tháo đường bằng cách ức chế dòng tín hiệu qua trung gian stress oxy hóa, TNFalpha liên quan và con đường apoptotic phụ thuộc ty thể ở chuột mắc bệnh tiểu đường do streptozotocin gây ra. Plos One. 2014;9(9):e107220. [Bài viết miễn phí PMC Châu Âu] [Tóm tắt] [Google Scholar]
240. Sedeek M, Gutsol A, Montezano AC, Burger D, Nguyễn Đình Cát A, Kennedy CR, Burns KD, Cooper ME, Jandeleit-Dahm K, Trang P. et al. Tác dụng tái tạo của chất ức chế Nox1/4 mới trong mô hình chuột mắc bệnh tiểu đường Loại 2. Khoa học lâm sàng (Luân Đôn) 2013;124(3):191–202. [Tóm tắt] [Google Scholar]
241. ten Freyhaus H, Huntgeburth M, Wingler K, Schnitker J, Baumer AT, Vantler M, Bekhite MM, Wartenberg M, Sauer H, Rosenkranz S. Chất ức chế Novel Nox VAS2870 làm suy giảm phản ứng hóa ứng động của tế bào cơ trơn phụ thuộc vào PDGF, nhưng không làm tăng sinh. Tim mạch Res. 2006;71(2):331–341. [Tóm tắt] [Google Scholar]
242. Lv M, Chen Z, Hu G, Li Q. Các chiến lược điều trị bệnh thận đái tháo đường: tiến bộ gần đây và viễn cảnh tương lai. Thuốc Discov ngày nay. 2015;20(3):332–346. [Tóm tắt] [Google Scholar]